
经典案例 | 康乃馨T2T高质量组装揭示基因组结构与基因表达相关性
近期,中国农业科学院深圳农业基因组研究所佛山鲲鹏现代农业研究院、岭南现代农业广东省实验室深圳分室和莫道克大学联合通讯,在Horticulture Research上发表了最新研究成果,组装了单倍型康乃馨高质量T2T基因组,分析了三种组织中等位基因的特异性表达以及基因组结构与单倍型基因表达的关系。
文章题目
The haplotype-resolved T2T carnation (Dianthus caryophyllus) genome reveal the correlation between genome architecture and gene expression
第一作者:Lan Lan, Luhong Leng, Weichao Liu
通讯作者:Wayne Reeve, Zhiqiang Wu, Xiaoni Zhang
通讯单位:中国农业科学院深圳农业基因组研究所佛山鲲鹏现代农业研究院、岭南现代农业广东省实验室深圳分室和莫道克大学联合通讯
杂志:Horticulture Research
影响因子:8.7/Q1
文章链接:
https://doi.org/10.1093/hr/uhad244
研究背景
康乃馨(Dianthus caryophyllus L.)属于石竹科石竹属,是一种分布在世界各地的重要观赏植物,由于其花色鲜艳,形态丰富,被广泛用作切花、盆花、庭院花以及花坛美化,虽然市场上已经有许多康乃馨品种,但消费者和种植者对具有特定特征的新品种需求仍然很大。消费者希望切花颜色多样,香味浓郁且寿命长,种植者希望其能够提高抗病性并延长花期。迄今为止,栽培者一直采用种间和种内杂交策略来培育具有多样性和高质量观赏性状的栽培品种。高质量基因组有助于提高育种效率和改善植物品质,但基因组组装草图中仍存在许多空白,许多研究忽略了基因组组装中的“暗物质”区域。
基因表达是性状形成的关键过程之一,近年来许多研究发现,遗传变异和等位基因的不平衡表达是导致性状多样性的主要原因,等位基因之间mRNA丰度的不平衡被称为“等位基因特异性表达”(ASE)。基因组结构是基因组内功能元件(0的排列,可以用线性方式表示,它可以在基因调控中发挥关键作用。TEs可以调节基因在调控网络、增强子、转录因子结合位点、绝缘体序列和抑制元件中的表达,其在康乃馨基因组中普遍存在,但很少被剖析,且缺乏完整和准确基因组数据也阻碍了对基因组结构的研究。
技术方案
HiFi➕ONT➕Hi-C综合测序
基因组结构与着丝粒结构分析
基因组结构与基因表达相关性研究
等位基因特异性表达分析
研究意义
完整T2T康乃馨基因组为重要观赏性状的调控研究和遗传改良提供了宝贵理论依据,也为分析石竹属植物的开花时间与端粒区长度的关系提供了非常有价值的新见解。
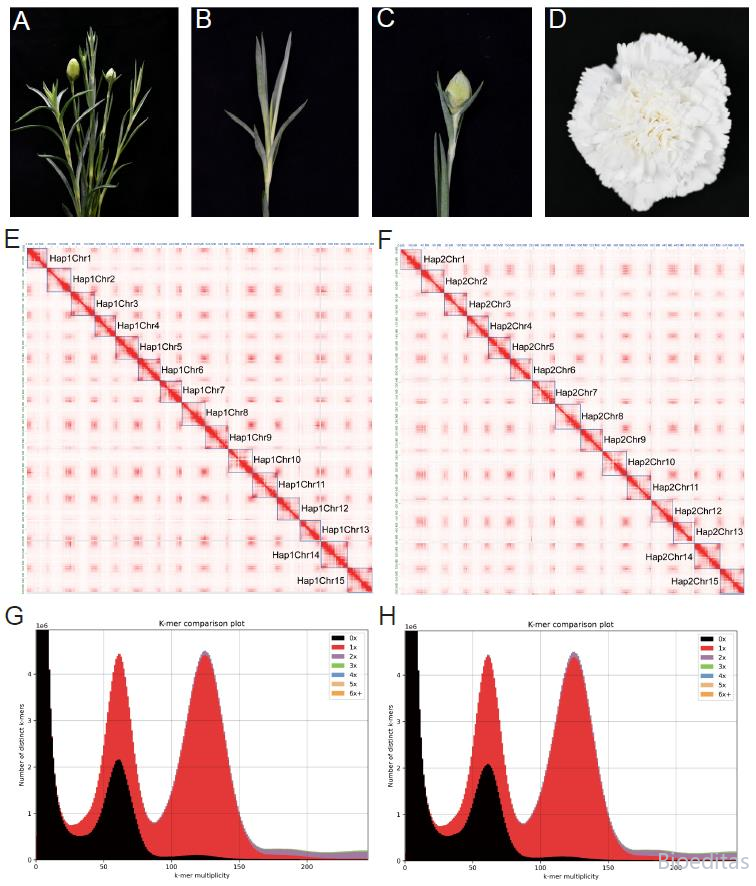
▲“Baltico”的表型和无间隙基因组组装特征
研究利用HiFi、ONT和Hi-C技术对康乃馨白色标准品进行了综合测序,所得总数据大小为4.04 Gb,通过hifiasm生成GFA得到了一个高连续基因组图谱。两个不同单倍型(以下分别称Hap1和Hap2)的组装大小分别为564,479,117 和 568,266,215 bp,每个组装共包含29个contigs,N50大小分别为183 37,578,261 bp和38,006,131 bp。填补间隙后利用BUSCO对两个单倍型的组装结果再次进行评价,Hap1的BUSCO值从97.9%增加到98.0(EM),从93.8%增加到93.9%(EU);Hap2的BUSCO值从97.2%上升至97.4%(EM),从93.2%上升至93.7%(EU)。利用Hi-C数据成功地将contigs锚定到15个假染色体中,总共28个间隙(Hap114个,Hap214个),还检测到在Hap1和Hap2中分别缺失了4个和6个端粒。基于这些结果,生成了编译了两个高质量“Baltico”无间隙单倍型。
研究人员检查了两个无间隙基因组和“SQ”基因组中着丝粒和端粒的位置,在两个无间隙的“Baltico”单倍型中,每条染色体两端都发现了端粒重复区域,“SQ”基因组缺少9个端粒。通过检测HOR鉴定候选着丝粒区域,在“Baltico”的两个单倍型中检测到4个候选着丝粒区域,其中两个在Chr10中发现,两个在Chr13中发现。候选着丝粒的大小在995,471~2,646,945bp之间;基于reads的方法来识别候选着丝粒区域,只检测到三个候选区域,这些结果显示了康乃馨着丝粒区不同寻常的特征。此外,不仅在“Baltico”无间隙基因组中无法通过HOR识别着丝粒区域,在“SQ”基因组中也无法识别着丝粒区域。将这两个无间隙单倍型与“SQ”基因组进行比较,发现它们之间存在较强的共线性:Hap1和Hap2与“SQ”共链区域的比例分别为80.78%和78.40%。一些染色体如Chr10在“SQ”和两种无间隙单倍型之间表现出极强的共线性,但在Chr3中,“SQ”与Hap1共线性区域的比例为99.79%,“SQ”与Hap2共线性区域的比例仅为67.22%;。在Chr2中,“SQ”与Hap1之间的共线性区域比例为62.58%,而“SQ”与Hap2之间共线性区域高达99.91%;“SQ”与Hap1和Hap2之间分别有1984和1989个结构差异。这些发现表明不同品种之间存在巨大差异。
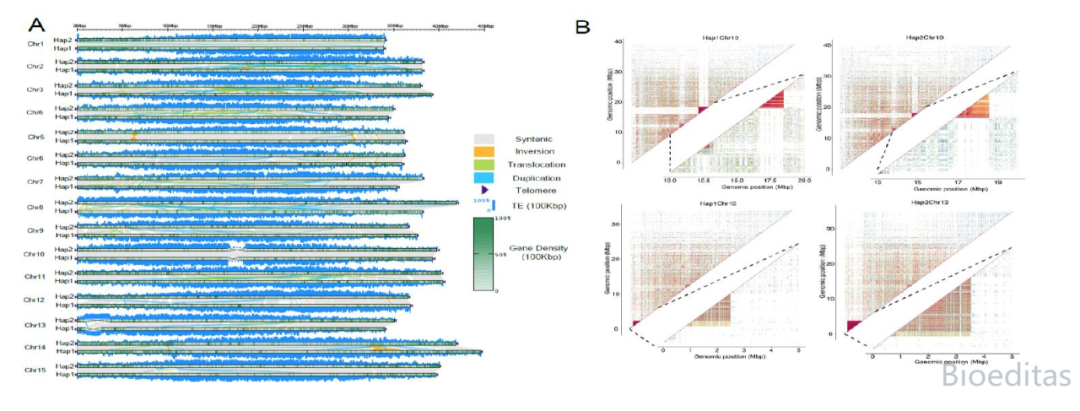
▲“Baltico”无间隙基因组中每条染色体的基因组结构和四个着丝粒结构
已有研究表明外显子、基因和内含子的长度以及TE的插入会影响基因的表达水平,研究人员分析了这些因素是否会影响康乃馨的表达水平。对于表达基因与未表达基因的比例,发现CDS、内含子和基因长度较长的基因在不同组织中倾向于表达,且长度较长的基因(无论是CDS还是内含子)的表达比例显著高于较短的基因。不同外显子数的基因表现出不同的表达比例,在不同的组织中,随着外显子数量的增加基因的表达率呈上升趋势;还发现两个外显子的基因与不同外显子数量的基因相比表达率最低。由于不同外显子数的表达比例不同,研究人员进一步通过KEGG分析来检查特定外显子数的基因具有的主要功能,结果表明,在不同外显子数的组中“Brite Hierarchies”和“Metabolism”的主要类都显著富集;“有机体系统”由含有7、8和10个以上外显子的基因共享;含有1、2、3和10个以上外显子的基因共享“环境信息处理”途径;除含有7个外显子的基因外,其余各组均存在“遗传信息加工”现象,说明不同外显子数量的基因对基因功能存在偏好。
研究人员分别在Hap1和Hap2中发现了70,563个和76,690个完整的TEs,在康乃馨中TEs更有可能插入到基因的侧翼区域,并且这些插入倾向于在上游区域。在那些插入基因位点的TEs中,大多数插入了内含子,且TE插入也与基因表达率相关:与TE插入不相关的基因相比,与TE插入相关的基因的表达率显著降低;当TEs插入到Hap2的上游5kb和内含子区域时,与不相关基因相比没有显著差异;外显子插入TEs的基因在两种单倍型中表达率最低,且与其他插入型或非插入型相比差异显著。这些结果表明,CDS长度、内含子和基因、基因外显子数量和特定TEs插入都与表达率显著相关。
进一步检查了表达比例可能受不同基因组结构影响表达基因的表达水平,在不同组织中发现,叶片中的Hap1以及根系中的Hap1和Hap2在不同长度的CDS中表达水平无显著差异,而其他组织或单倍型在比较长、短基因时均表现出显著的表达水平差异。一般模式表明,较长的基因、CDS和内含子的表达水平往往高于较短的基因,即外显子越多,表达水平越高,与外显子数少于2的基因相比,外显子数大于5的基因尤其如此,外显子数少于2的基因在所有组织和单倍型中的表达水平明显更高。TEs在基因表达的直接或间接调控中也发挥着重要作用,外显子区域插入TEs时,两种单倍型在不同组织中的表达水平均显著低于未插入TEs的基因和总基因。在Hap1的不同组织中发现,有TE插入基因的表达水平明显低于没有TE插入基因的表达水平;在Hap2中也是如此,但在根中存在差异,其中上游5kb区域的TE插入与上游2kb区域的TE插入与总数相比没有显著差异。因此研究人员推测,单倍型受到TEs的影响可能不同,这进一步证明了单倍型之间的差异。GDA分析也表现了TE含量和基因之间更直观的相关性。
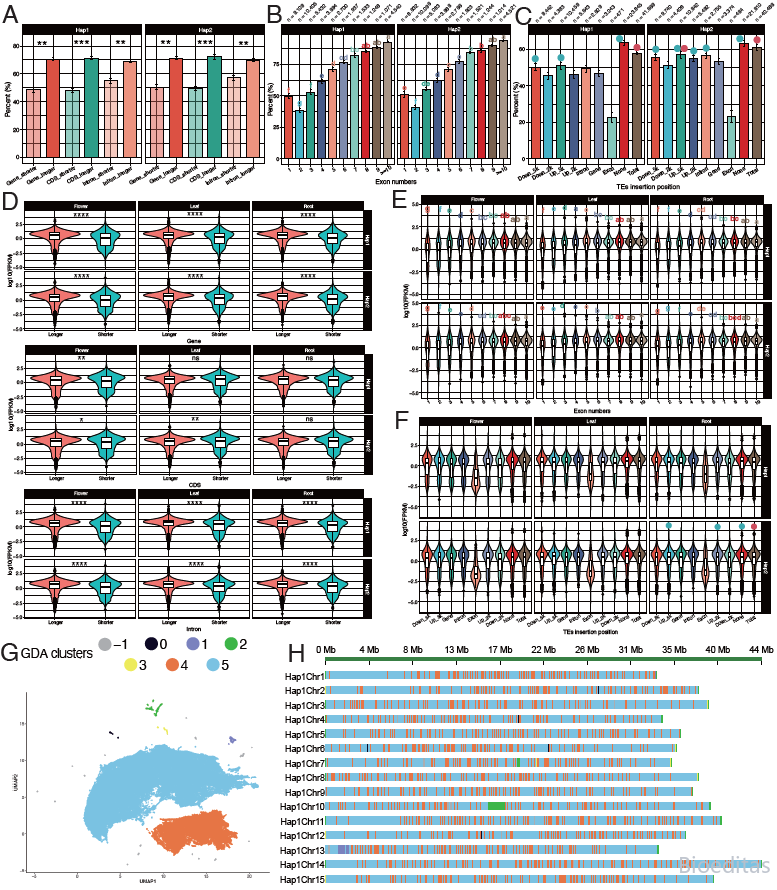
▲基因表达与基因组结构的相关性研究
研究人员确定了两个无间隙单倍型之间的同源区和结构变异,Hap1和Hap2在不同染色体上的同源区比例分别为55.88~99.99%和57.13~99.93%。随后在两个单倍型之间鉴定出10,256个等位基因至少包含一个SNP变异,以及16,036个在这些单倍型之间具有相同编码序列的“单等位基因”。大多数等位基因的CDS相似度在95%~99%之间,两个单倍型之间的基因相似性与两个品种之间的相似度相当。为了深入了解等位基因的ASE,研究人员利用“Baltico”的开花、根和幼叶的转录组数据进行了分析,在3个组织中发现,花、根和叶中分别有31.55%、33.94%和29.28%的表达基因为ASE;其中,在根、花和叶中分别有2907个、2779个和2487个等位基因不平衡表达。结果表明,叶片中双等位基因的表达量(70.72%)高于花(68.45%)和根(66.06%),其中一个等位基因在根中的表达量(30.76%)高于其他组织。在三种组织中共表达的4284个等位基因中,约有1379个等位基因表现出显著差异,在根、叶和花中分别有799、398和597个等位基因表达不平衡。
花、叶和根中单等位基因表达的Ka/Ks值均高于双等位基因,三种组织中双等位基因的Ka/Ks值均显著低于其他表达型,说明大多数双等位基因具有进化保守性。两种单倍型中三种组织的等位基因表达增加没有偏倚。GO分析表明,花的双等位基因主要富集在“RNA结合”、“结构分子活性”和“核糖体结构成分”方面;花组织表达不平衡的等位基因中,“催化活性”、“转运体活性”和“跨膜转运体活性”显著富集;与花组织一样,根和叶中双等位基因和不平衡表达等位基因在GO中的富集程度相似,表明差异表达的等位基因没有显著的组织特异性。
为了验证ASE是否与TEs插入相关,研究人员在花、叶和根中分别检测到1098个、964个和1151个特定TEs插入的ASE,占ASE总数的38~39%。单倍型间不同组织的ASE可能在康乃馨性状的形成中起重要作用。与TE插入和低表达水平相关的一般模式一致,特异TE插入的等位基因表达显著低于未插入TE的等位基因,以此看来,康乃馨中TEs的主要特征是抑制性元件,插入外显子区域的TEs与基因下调或基因沉默有显著相关性,这种与TEs相关的下调过程可能是通过特定插入破坏基因的正常结构来实现的。研究中发现侧翼基因区域的特定DNA/DTH插入与与基因表达的显著降低有关,这表明等位基因不平衡可能是由特定TE插入引起的。
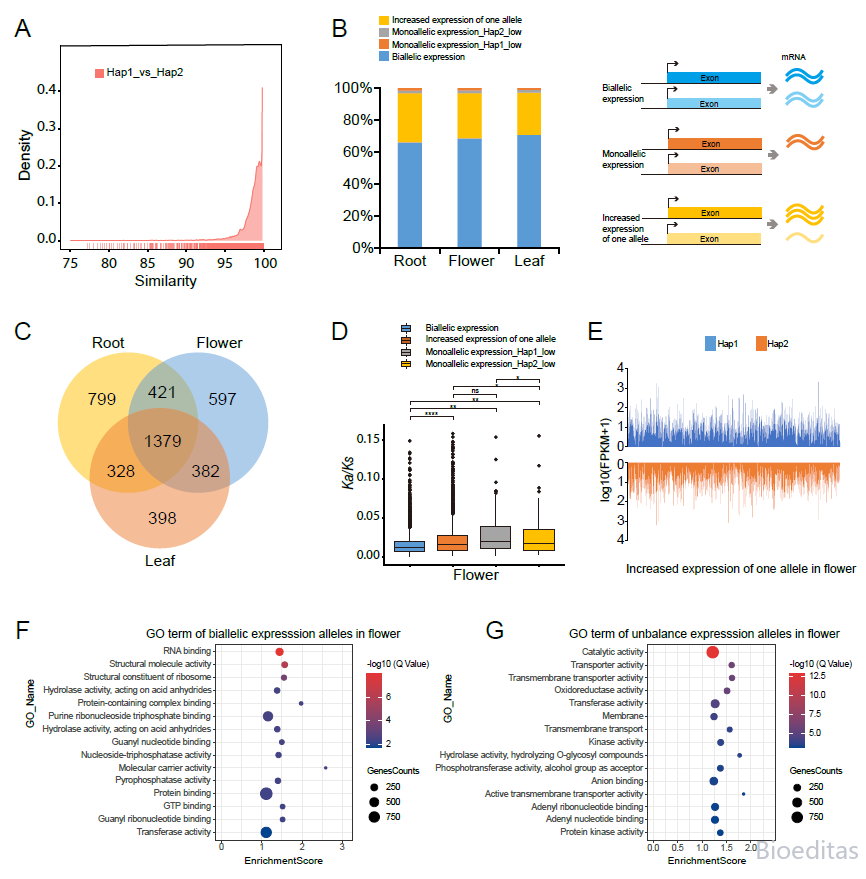
▲等位基因的特异表达特征

