经典案例 | 龙舌兰杂交种基因组组装揭示CAM光合作用奥秘
近期,中国热带农业科学院南亚热带作物研究所/湛江市热带作物遗传改良重点实验室在Horticulture Research上发表了研究成果,组装了中国唯一培育的商业高产杂交种龙舌兰NO.11648基因组,揭示了龙舌兰基因组进化机制以及CAM通路进化过程。
文章题目
A chromosome-level genome assembly of Agave hybrid NO.11648 provides insights into the CAM photosynthesis
第一作者:Ziping Yang, Qian Yang
通讯作者:Ziping Yang, Wenzhao Zhou
通讯单位:中国热带农业科学院南亚热带作物研究所/湛江市热带作物遗传改良重点实验室
杂志:Horticulture Research
影响因子:8.7/Q1
文章链接:
https://doi.org/10.1093/hr/uhad269
研究背景
龙舌兰属,由大约166个物种组成,以其长寿命、单果性和旱生特性而闻名。作为一种典型的景天酸代谢(CAM)作物,能在极端炎热和干旱的环境中茁壮成长。大多数用于获取饮料、纤维、食品和药物的商业开发物种都来自龙舌兰属。
CAM是一种重要代谢途径,使许多植物能够适应如干旱、低二氧化碳或高温等极端环境,大约6%的开花植物具有CAM,也存在于附生植物和少数水生物种中。根据特定物种的进化历史及其环境背景,CAM的运作程度可能会有很大不同:兼性CAM植物有能力在非生物胁迫下恢复 CAM,而组成型CAM植物在整个生命周期中都依赖CAM途径;与C3/C4植物相比,CAM植物在夜间吸收大部分二氧化碳,从而最大限度地提高水分利用效率;C3/C4物种中存在CAM途径所需的所有基因,其核心生化特征与C3/C4植物相似。先前的基因组和转录组研究分析了一些物种中CAM相关基因表达的进化可塑性和昼夜重编程,龙舌兰属植物可持续表达CAM相关基因。然而,由于缺乏基因组信息,因此无法将龙舌兰属植物与其他CAM物种进行有价值的比较。
技术方案
ONT和Hi-C测序技术
比较基因组学和系统发育分析
基因组进化分析
WGCNA分析
酵母单杂交技术
研究意义
研究得出的龙舌兰高质量参考基因组揭示WGD事件和LTR增殖是导致龙舌兰杂交基因组扩增的主要因素,基因复制和基因表达重编程都可能导致CAM光合作用的进化。研究结果为植物的比较、进化和功能基因组学分析提供了新的的见解,促进了对CAM进化的深入理解,为龙舌兰的生物学研究和遗传改良提供了宝贵基因组资源。
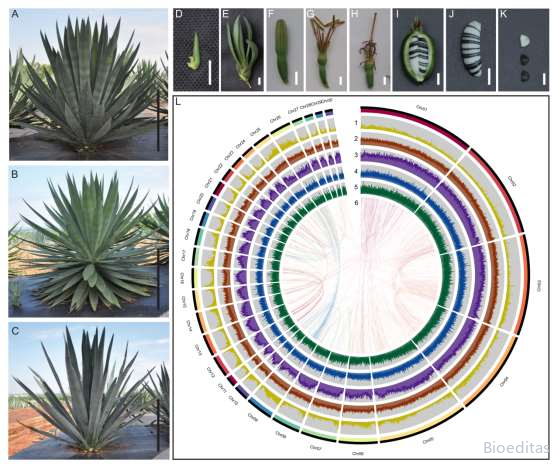
▲植物形态、基因组特征和合成信息
利用Illumina、ONT和Hi-C技术对龙舌兰杂交种NO.11648进行了测序组装,获得的基因组大小为4.87 Gb,scaffold N50为186.42 Mb,锚定在30条假染色体上,30条假染色体的大小从36.41到584.22 Mb不等。基因组注释发现了58,841个蛋白编码基因和76.91 %的重复序列,其中最主要的重复序列是I型重复序列(Copia和Gypsy分别占基因组的18.34%和13.5%)。BUSCO评估组装完整性为99.11%,LTR组装指数(LAI)为10.95,符合参考质量标准。
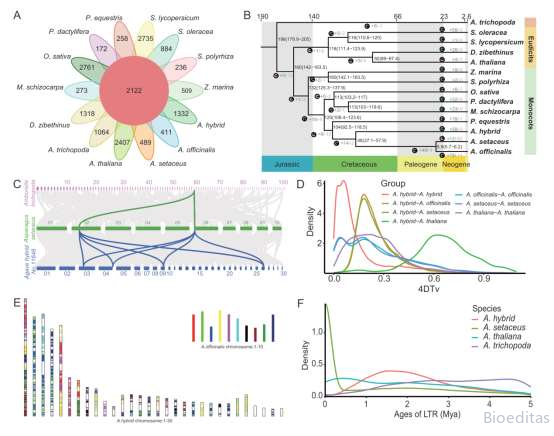
▲龙舌兰杂交基因组系统发育、进化分析和比较基因组分析
对14个物种的蛋白质编码基因进行了比对,确定了同源基因并划分了基因家族,并进行了比较基因组分析。在这些物种中,属于兰科的芦笋(A. officinalis)、文竹(A. setaceus)、小兰屿蝴蝶兰(P. equestris)和龙舌兰属于天门冬目,其中除小兰屿蝴蝶兰其他三个属于天门冬科,具有最密切的系统发育关系。预测的58,841个基因中,1,332个基因为杂交种所特有。KEGG分析表明,这些特有基因主要与戊糖和葡萄糖醛酸转换、光合生物碳固定途径以及倍半萜和三萜的生物合成有关。
通过对212个单拷贝基因的序列比对构建系统发育树,研究结果证实,在天门冬科中,杂交种龙舌兰与芦笋和文竹祖先分化时间约为48Mya前。
研究分析了基因家族的收缩和扩增,发现杂交种中扩增了58个基因簇(692个基因)。KEGG分析显示,大部分扩增基因富集在果糖和甘露糖代谢、植物与病原体相互作用以及戊糖和葡萄糖醛酸转换途径中;GO分析发现,扩增的基因富集于对生物刺激的响应、叶片衰老和碳水化合物转运过程中。
在杂交种中观察到两个4DTv峰值,分别为~0.026和~0.059,还观察到龙舌兰vs.芦笋和龙舌兰vs.文竹的分化峰值(4DTv~0.181和~0.182)。比较峰值位置表明,龙舌兰与芦笋(或文竹)分化后经历了两次全基因组复制(WGD)事件;此外,还观察到在龙舌兰和芦笋(或文竹)分化后,龙舌兰基因组出现了染色体重排;还发现杂交种龙舌兰的LTR插入比例相对较低,但插入时间较长。
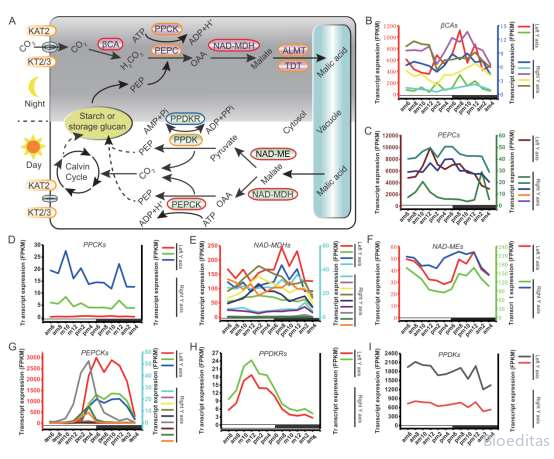
▲龙舌兰CAM通路关键基因及其表达模式
为了研究光合作用从C3/C4到CAM植物的进化过程,试图鉴定CAM、C3和C4植物中与碳固定相关的13个基因家族,但在龙舌兰杂交种中,PEPC-R基因的数量为0,因此实际鉴定了12个基因家族。杂交种龙舌兰在12个基因家族中比C4和C3植物有更多的αCAs和PEPCKs基因。基于研究结果可以初步推断出,龙舌兰基因组中的PEPCKs可能通过基因剂量或复制参与CAM调控。
研究人员比较了21个物种中13个CAM通路基因数量的进化变化。对于单子叶和双子叶C3植物,基因损失显著大于基因获得;在3种C4植物中,基因损失也超过了基因获得;兼性植物(C3/CAM)的基因损益是平衡的。总体而言,CAM植物的基因损失大于增益,但疏花落地生根(Kalanche laxiflora)和龙舌兰的基因增益大于损失。
为了确定昼夜条件下CAM相关基因的表达谱,研究人员在24小时内每隔2小时对杂交种龙舌兰的光合叶片组织进行采样,分析RNA测序数据。结果表明,在实验条件下,部分CAM途径基因的表达谱发生了变化。例如,1个βCA在夜间有较强的表达,在晚上8点和12点达到峰值;4 个NAD-MDHs在夜间的表达水平高于白天,在晚8点和12点达到峰值;虽然PEPCs和PPCKs的表达在晚12点和凌晨2点达到峰值,但它们在夜间的表达水平并没有明显高于白天。
白天负责脱羧的基因,如NAD-MDHs的三个成员,在夜间的表达水平较高;所有NADP-MDHs在白天和夜间都表现出较高的转录丰度;两种NADP-MEs的表达呈昼夜峰值,峰值出现在中午;尽管两个PPDK在白天和黑夜都有丰富转录本,但它们并没有表现出昼夜表达模式;同样,三个PEPCK在夜间的转录本丰度较高,只有一个PEPCK在白天的表达水平较高,在下午4点达到峰值;还发现5 αCA在夜间的转录本表达水平高于白天。
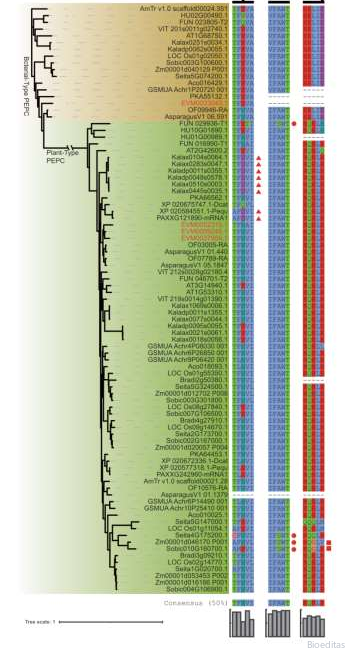
▲不同物种共有的PEPC氨基酸趋同变化
以往的研究发现,在一些植物中PEPC蛋白序列发生了趋同性变化,研究人员对21个物种的PEPC蛋白序列进行了比对,发现在杂交种龙舌兰中没有观察到这些趋同性变化。相比之下,在量天尺(Hylocereus undatus)中发现了R/K/H向D的趋同替换,在CAM植物马齿苋(Portulaca amilis)的PEPC中发现了A向S的突变。为了分析其他龙舌兰种属中是否存在这种趋同变化,收集了9个龙舌兰物种和6个龙舌兰杂交品种的RNA序列,并从NCBI收集了3个物种的转录组数据以鉴定PEPC蛋白序列,发现在12个物种和6个龙舌兰杂交种中未检测到趋同变化。这些发现表明,单个氨基酸突变可能不是 龙舌兰杂交种PEPC演化的关键。
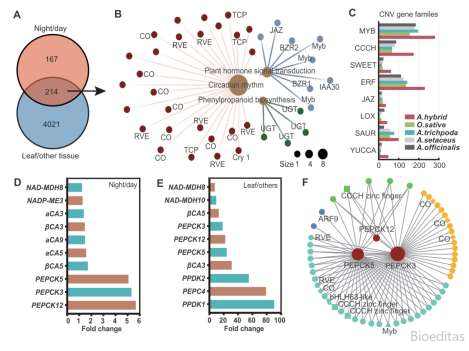
▲CAM通路基因的转录调控
二氧化碳吸收和固定的时间调节是CAM的主要特征。为了探索这一现象,研究人员分析了昼夜期间叶片和其他组织中的基因水平,筛选确定了4235个基因在叶片中的水平高于其他组织,381个基因在夜间的转录丰度高于白天;进一步分析发现,214个基因在叶片中的表达水平高于其他组织,在夜间的表达水平高于白天。这些基因主要参与昼夜节律、CAM 途径、植物激素信号转导和糖代谢过程。还发现杂交种龙舌兰可能通过提高PEPCKs的水平来实现CAM,而参与昼夜节律、糖代谢和植物激素信号转导的基因可能会调控CAM途径中基因的表达。
为了探索三种PEPCKs调控潜在分子机制,对所有8468个差异表达基因的转录组数据进行了WGCNA分析,发现13个共表达模块,其中3个模块与夜间采集的叶片样品呈正相关,这三个模块中的共表达基因主要涉及淀粉和蔗糖代谢、昼夜节律和植物激素信号转导,包括编码参与CAM途径的蛋白质的关键基因,如黄绿色模块PEPCK3、PEPCK5 和 PEPCK12。这些结果表明,这些共表达模块中的基因在确定CAM的夜间过程中至关重要。另外,一些模块(sienna3、coral1、plum2 和 lightcyan1)与白天采集的叶片样本相关,在多个生物过程中都有较高的代表性,在这些模块中还发现了几个参与CAM的关键蛋白编码基因,如PPDK-R1、PPDK-R2、aCA1等。
利用WGCNA对黄绿色模块的进一步分析表明,有54个基因与PEPCK3、PEPCK5和PEPCK12共表达。这些模块中三个PEPCKs的共表达网络参与了昼夜节律,CO和RVE基因的存在表明了这一点。此外,在这个共表达网络中还发现了几个转录因子,包括ARF、Myb、bHLH和CCCH锌指。还有三个CO基因和一个ARF9基因与PEPCK3和PEPCK5呈单一共表达。这些发现表明,参与激素信号和昼夜节律的转录因子可能是调节杂交种龙舌兰中三种 PEPCKs(PEPCK3、PEPCK5和PEPCK12)表达的关键。
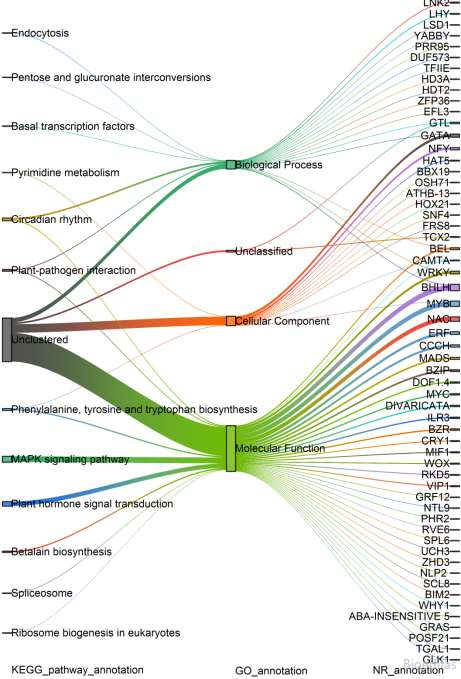
▲转录因子聚类分析
利用酵母单杂交系统筛选可能调控PEPCK的转录因子,以PEPCK3启动子为诱饵,通过酵母杂交共鉴定出了143个转录因子,这些转录因子富集于3个GO和12个KEGG通路中,包括58个蛋白家族。根据蛋白质功能分析,KEGG通路的前三位分别是MAPK信号通路、昼夜节律通路和植物激素信号转导通路;根据蛋白家族的数量,BHLH、MYB、NAC、ERF、CCCH、GATA、NYF、BEL、WRKY和bZIP是含量最高的十大转录因子。这些研究结果表明,杂交种龙舌兰中PEPCK3的表达可能受多种途径调控。