
经典案例 | 全基因组甲基化、转录组和代谢组研究揭示盾叶薯蓣中薯蓣皂素和油菜素内酯之间的动态平衡机制
近期,杂交水稻全国重点实验室(武汉大学)在Horticulture Research上发表了研究成果,整合了盾叶薯蓣全基因组甲基化、转录组和代谢组数据,阐明了为薯蓣皂素和油菜素内酯之间的动态平衡机制。
文章题目
The succinct title: Genome-wide methylation, transcriptome and characteristic metabolites reveal the balance between diosgenin and brassinosteroids in Dioscorea zingiberensis
第一作者:Zihao Li
通讯作者:Jiaru Li
通讯单位:杂交水稻全国重点实验室(武汉大学)
杂志:Horticulture Research
影响因子:8.7/Q1
文章链接:
https://doi.org/10.1093/hr/uhae056
研究背景
薯蓣皂素(Diosgenin, DG)是薯蓣属植物中发现的一种甾体类固醇,由于其简单经济等优点,70多年来一直是合成类固醇激素药物的理想原料,特别是1943年Marker等人以薯蓣皂素为起始原料成功合成孕酮以来。它被认为是类固醇的十大来源之一,是最普遍接受的植物源性药物。大多数薯蓣属植物的根茎中含有DG,约有30种植物的DG含量超过干重的1%。其中,中国特有种盾叶薯蓣(Dioscorea zingiberensis C. H. Wright)单株根状茎中DG含量最高,达16.15%。
油菜素内酯(Brassinosteroids, BRs)是植物中发现的第六类激素,是一种多羟基类固醇激素,在植物发育和生长中起着关键作用,能够控制细胞伸长、细胞分裂、光形态发生、木质部分化、繁殖以及非生物/生物胁迫反应等过程。迄今为止,油菜素内酯已被研究了50多年,并已成为植物生长发育必需的植物激素,各种研究都强调了BRs在植物次生代谢和环境胁迫适应中的重要性。例如,外源24-表油菜素内酯(24-EBR)处理显著提高了黄瓜叶片叶绿素含量和次生代谢产物的产量;在镍胁迫下,补充24-EBR提高了番茄植株合成代谢物的能力等。
根据其化学结构,DG和BRs可分为螺甾醇皂苷和胆固醇醇皂苷,前者是一种螺甾醇皂苷,而后者为胆固醇产生的甾醇。角鲨烯是由乙酰辅酶A和G3P-丙酮酸通过MEP和MVA途径生成的,从而形成环阿屯醇。在DG的生物合成过程中,DWF1、CYP51A、C14-R、C5-SD、CYP90s和其他CYP450s酶参与了随后的修饰;BRs也是由环阿屯醇作为前体产生的,与DG生物合成具有相同的酶。因此,DG和BRs具有共同的上游代谢途径和共同的合成前体。然而,维持这两种物质合成平衡的机制尚有待探究。
大多数植物中都含有BRs,而DG主要存在于薯蓣类植物中,研究油菜素甾酮发现,蓖麻甾酮是薯蓣物种中的主要BRs之一。由于植物次生代谢产物具有物种特异性,因此用传统模式植物进行DG研究有许多限制。与所有DG资源植物相比,盾叶薯蓣是进行DG生物合成研究的最佳物种,研究DG与BRs之间的相关性是鉴别盾叶薯蓣的最佳方法。通过分析这两种化合物之间的联系,可以达到增加DG量的目的。此外,引导植物对外部胁迫做出反应的表观遗传学机制也是近期最重要的发现之一,其中DNA 甲基化作为最早发现的调控机制之一,已在表观遗传学中得到广泛研究。高等植物中大约有20-30%的胞嘧啶被甲基化,不同植物组织在不同条件下的DNA甲基化水平差异很大,植物在生长发育过程中可以通过控制基因组DNA的甲基化平衡来适应生物和非生物胁迫。因此,DG和BRs的代谢与DNA甲基化也密切相关。
技术方案
全基因组甲基化➕转录组➕代谢组分析
加权基因共表达网络分析(WGCNA)
全基因组重亚硫酸盐甲基化测序(WGBS)
研究意义
研究有助于明确盾叶薯蓣特征代谢物的调控网络,为其分子研究提供了新的见解。不仅为了解植物中DG和BR之间的动态平衡奠定了理论基础,也为确定次生代谢物与植物激素调节之间的平衡提供了新的途径。
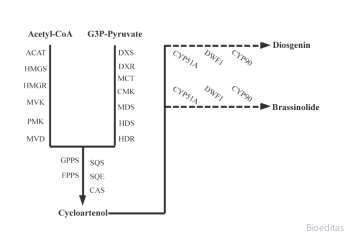
▲DG和BRs生物合成途径的共同部分
BL和BRZ处理之间特征代谢物的变化
从BL(brassinolide)和BRZ(BRs合成抑制剂)处理后不同时间段的薯蓣样品中提取了几种特征代谢物,以更好地了解DG和BRs之间的关系,对BR的浓度和BRZ的作用进行了初步研究。选择M1(0.5 μM)、M2(1 μM)、M3(2.5 μM)和M4(5 μM)四种浓度观察DG的变化,结果表明,BLM1和BLM2处理的DG水平变化趋势相同,而BLM4处理的DG水平显著低于其三组;BRZM1、BRZM2和BRZM3处理的DG含量变化趋势相同,但BRZM3处理后DG含量显著低于BRZM1和BRZM2处理;BRZM4处理后的DG与其他三组比较差异有统计学意义。为了确保BL和BRZ具有特定的生理功能而非毒性作用,选择BLM2和BZRM2进行后续实验。
在BR代谢途径中,菜油甾醇(campesterol)是一种中间产物,油菜素甾酮(castasterone)作为主要的活性BR,也是生物合成BL的前体物质。在BLM2处理48小时后,菜油甾醇水平继续下降59.91%;BRZM2处理后,菜油甾醇含量在12h和48h分别增加了91.73%和29.53%。在BLM2处理后的12h和48h, 油菜素甾酮含量分别增加了58.47%和230.94%;在BRZM2处理6h/12h时,油菜素甾酮含量下降了约20%,随后在24 h/48h时恢复到基线水平。
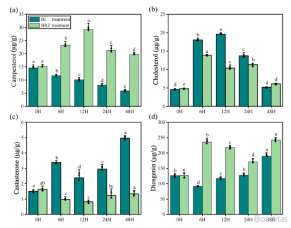
▲BLM2/BRZM2处理后特征代谢物的变化
胆固醇是DG代谢途径的中间产物,或实验中胆固醇总体呈上升趋势,在BLM2处理后12h达到峰值(327.62%)。胆固醇含量还呈上升趋势,12h时胆固醇升高114.83%,比BLM2处理低47.12%。值得注意的是,在BLM2处理后6h, DG含量有显著下降趋势;在12h/24h时,DG含量下降到初始水平;而在BRZM2处理6h时,DG含量增加了85.34%;DG在12h、24h和48h均显著升高,其中48h增幅最大,达90.58%。
综上所述,在BL/BRZ处理后,DG和BRs的代谢途径呈现出不同趋势,即油菜素甾酮含量变化趋势与菜油甾醇含量变化趋势不同,特别是DG和油菜素甾酮的合成可能涉及DG和BRs之间的平衡。反过来说,BL处理导致盾叶薯蓣功能代谢物合成的显著变化,故研究人员通过转录组测序进一步研究了BL处理后DG和BR通路。
盾叶薯蓣中的不同表达基因
为了进一步探讨盾叶薯蓣DG与BRs之间的关系及其基因表达的变化,研究人员对BL处理0、6、12、24、48h的盾叶薯蓣叶片进行了全面的转录组分析,共构建了15个RNA-seq文库。在DZB6H、DZB12H、DZB24H和DZB48H中分别鉴定出与DZB0H相比的差异表达基因(DEGs)分别为1,916个、2005个、1,966个和1,839个;还在这些组中发现了791、783、798和914个上调基因,以及1125、1222、194、1168和925个下调基因。
KEGG分析表明,DEGs主要与核糖体、代谢、类黄酮生物合成、其他次生代谢物的生物合成和细胞色素P450途径有关;GO分析将大多数DEGs划分为BL处理后的各种代谢或生物合成过程,这种下游代谢物的增加在DZB24H中尤为显著。上述分析表明鉴定的DEGs包含了一定比例的植物胁迫响应相关基因,并且对BL处理后的蛋白酶合成、代谢途径和次生代谢产物有显著影响。
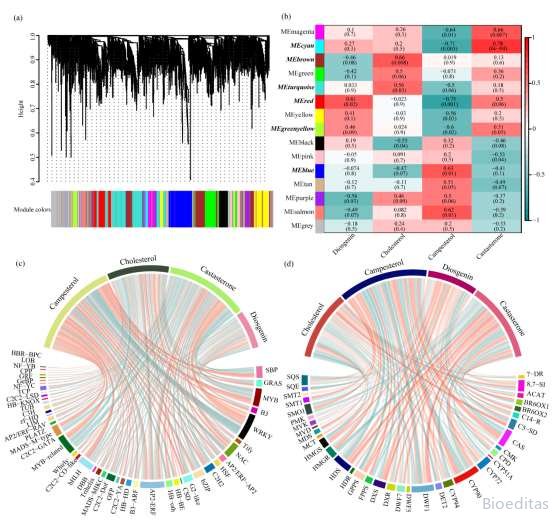
▲BLM2处理后选定基因的WGCNA分析
选定基因的加权基因共表达网络分析
为了探究盾叶薯蓣中DG与BR相关合成途径之间的关系,对DEGs数据进行了加权基因共表达网络分析(WGCNA),共鉴定出15个基因模块,每个模块的基因数从54到856不等。发现红色模块对DG和油菜素甾酮的合成至关重要;棕色/绿松石色模块与胆固醇显著相关,包含与8,7-SI、C5-SD、C-14R、DWF1-1/2、AP2s、C2C2s等相关的基因和TFs;与油菜素甾酮相比,蓝色模块是菜油甾醇的重要成分,包括CAS、DWF1-3/4、DWF5、DWF7、SMT1以及大量的TFs,如bHLHs、bZIPs、MYBs和WRKYs;油菜素甾酮合成途径中富集的cyan模块包括DET2、CYP90等相关合成基因以及大量WRKYs。
这些结果表明,与DG合成高度相关的基因,包括CYP72s、CYP94s和CYP90s,主要集中在红色模块,而与胆固醇和菜油甾醇相关的基因则呈现相反的趋势,在棕色和蓝色模块中具有高度相关性;与油菜素甾酮通路相关的主要基因集中在黄绿色模块中。尽管菜油甾醇和油菜素甾酮是同一途径的产物,但它们由来自完全不同模块的基因组成。此外,还发现甾体皂苷途径的下游产物DG和油菜素甾酮在这些模块中表现出相同的趋势,表明两者在代谢途径中存在串扰。
研究人员对TFs/基因和代谢物进行了相关性分析,在WGCNA中筛选了46个TFs共255个拷贝和35个DG/BR相关基因共65个拷贝,发现BR通路受大量TFs调控,而DG通路受相对较少TFs调控;转录因子对菜油甾醇的调控最强烈,且大部分上调;而转录因子对DG的调控最小;还发现与上游途径最密切相关的代谢物菜油甾醇和胆固醇相,受转录因子的调控程度高于其下游代谢物油菜素甾酮和DG。
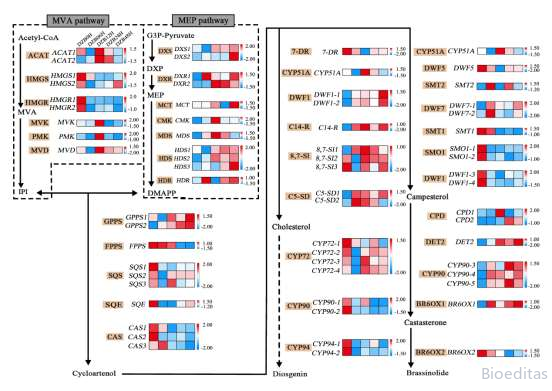
▲BLM2处理后盾叶薯蓣DG和BRs通路相关基因的表达流程图分析
BLM2处理后DG/BR相关基因的变化
对于WGCNA和基因组注释文件,研究人员手动整理了DG和BR通路相关的基因,包括MVA和MEP途径中的基因,分析了BL处理下WGCNA中这些基因的表达变化。发现与MVA途径相比,MEP途径中基因的表达增加,环阿屯醇-胆固醇通路中C14-R、8,7-Si和C5-SD的表达显著升高。在这些基因中,DWF5(7-DR)和CYP51A与胆固醇/菜油甾醇通路共享。处理前,胆固醇-DG通路基因CYP90-1~2、CYP94的表达相对降低;相反,环阿屯醇-菜油甾醇通路中的许多基因如SMT1、SMO1s和DWF1s表达下调,但某些基因如DET2、CYP90-3~5、BR6OX1的表达明显增加,导致油菜素甾酮积累。
通过不同的WGCNA模块筛选了基因同工形式对各种代谢物的贡献程度,基于代谢物的变化,研究人员假设DWF1-1/2在胆固醇产生中发挥更重要的作用,而DWF1-3/4对菜油甾醇水平的影响更大。通过qRT-PCR进一步验证,结果表明,这些代谢途径中的基因表达与下游代谢物活性密切相关。鉴定这些显著分化的通路相关候选基因也有助于了解盾叶薯蓣生物合成的分子机制。
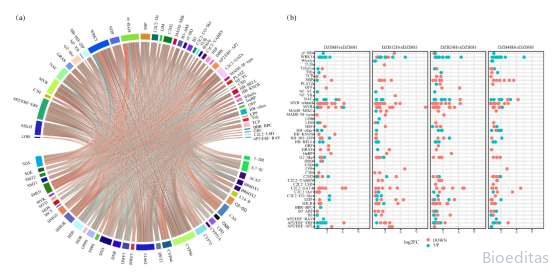
▲TFs的筛选及其差异表达基因
为了分析不同阶段的DEGs以确定构成DEGs重要子集的转录因子,研究人员通过结合和筛选代谢物-TF和DG/BRs相关基因- TF关联分析,共鉴定出了 255个拷贝,分析了BL处理后这些TFs随时间变化的差异。在DZB6H、DZB12H、DZB24H和DZB48H中分别鉴定出118个、111个、138个和118个TF-DEGs,这些TFs大多属于WRKYs、MYBs、MYB-relateds、NACs、C2H2s, AP2/ERFs和HBs家族,在某些家庭中,几个不同的成员同时受到调控,这可能表明不同TFs的成员可能参与了交叉调节。
CASs和CYP90s在调控DG/BR相关基因
方面发挥重要作用
从上述不同模块中筛选了CMTs、DRMs和其他植物甲基化相关基因,研究人员认为涉及DG和BRs的两条通路的变化在一定程度上是由基因甲基化引起的。因此,进行了全基因组重亚硫酸盐甲基化测序(WGBS)来探索转录和代谢变化的具体机制,从上述相同的样品中生成了17.74-20.07 Gb的全基因组甲基组数据,覆盖了>99%的所有胞嘧啶核苷酸。高差异DNA甲基化区(DMRs)比低甲基化DMRs占主导地位,DMRs在内含子和启动子中相对较高。对DMRs进行了KEGG和GO分析,结果表明大多数DMRs在代谢途径中富集。
研究人员还发现,BR相关基因和DG相关基因的平均甲基化水平与所有编码基因的甲基化水平相比存在显著差异,在CG和CHG测序环境中,BR相关基因的上游甲基化水平交替领先,而在CHH测序环境中,BR相关基因的甲基化水平几乎总是高于所有基因的甲基化水平;然而,在CG、CHG和CHH序列环境中,DG相关基因的甲基化水平大多高于总体基因甲基化水平。
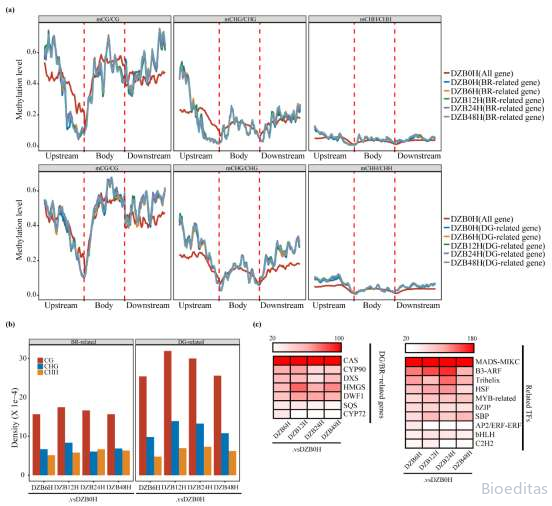
▲BLM2处理后盾叶菊薯蓣DG/BR相关基因DNA甲基化差异水平分析
但没有观察到DZB0H和BL处理之间甲基化水平的总体变化,这表明存在少量差异甲基化胞嘧啶(DMCs)。DG/BR相关基因中CG甲基化密度远高于CHG和CHH甲基化密度,在DZB12H处达到峰值,这表明CG甲基化在DG和BR通路中起主要作用。经BL处理后,CG-DMCs在CAS、CYP90、DXS、MADS-MIKC、B3-ARF、Trihelix和HSF中尤为普遍,CG甲基化持续发生变化。
进一步研究了三种(CG、CHG、CHH)背景下DG/ BR相关基因家族和相关TF中低DMCs和高DMCs的相对数量,发现CAS和CYP90的CG甲基化程度较高。此外,在BL处理中,CAS的CDS区域在所有三种序列环境中均以低DMCs为主,而CYP90在up2k序列下则以低CG-DMCs为主。
从CAS、CYP90、DXS、B3-ARF、Trihelix和HSF家族中鉴定出17个基因,这些基因在BL处理中CG甲基化与基因表达呈负相关。在CAS和CYP90基因的上游和编码区均发现负相关,表明表观遗传修饰与转录变化之间可能存在联系。此外,B3-ARF上游的低CG-DMCs发生率较高,而CDS区域的高DMCs普遍存在,导致基因表达降低,这表明转录变化与CDS区域甲基化密切相关。CYP90在CDS区表现出相对优势的超CG-DMCs,导致该基因不表达。综上所述说明,CAS和CYP90基因家族在盾叶薯蓣中可能发生低甲基化。这些发现表明,这些基因家族内的表观遗传修饰可能会影响盾叶薯蓣BRs和DG的合成,从而有可能会破坏BRs和DG之间的平衡。
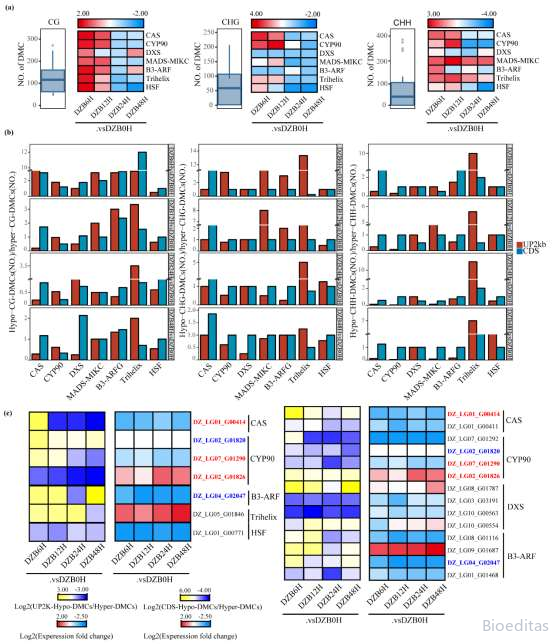
▲CG甲基化水平与基因表达呈负相关

