
经典案例 | 甘蓝泛基因组研究及结构变异分析揭示其驯化驱动力和多样化机制
近期,中国农业科学院蔬菜花卉研究所/蔬菜生物育种全国重点实验室和荷兰瓦赫宁根大学联合通讯,在Nature Genetics上发表了研究成果,利用27个高质量甘蓝基因组构建了泛基因组并鉴定了其结构变异,发现了SVs在基因表达中的双向作用,揭示了甘蓝品系驯化驱动力和多样性机制。
文章题目
Large-scale gene expression alterations introduced by structural variation drive morphotype diversification in Brassica oleracea
第一作者:Xing Li, Yong Wang, Chengcheng Cai, Jialei Ji, Fengqing Han, Lei Zhang
通讯作者:Kang Zhang, Honghao Lv, Guusje Bonnema. Yangyong Zhang, Feng Cheng
通讯单位:中国农业科学院蔬菜花卉研究所/蔬菜生物育种全国重点实验室和荷兰瓦赫宁根大学联合通讯
杂志:Nature Genetics
影响因子:30.8/Q1
文章链接:
https://www.nature.com/articles/s41588-024-01655-4
研究背景
甘蓝类蔬菜作物为十字花科芸薹属二年生草本植物,在世界范围内广泛种植,富含多种必需营养素,如十字花科植物特有的硫代葡萄糖苷。甘蓝类蔬菜形态变异非常多样,包括由多层叶片包裹形成叶球的结球甘蓝、腋芽分化形成小叶球的抱子甘蓝以及茎顶端分化形成巨大花球的花椰菜等,这种形态多样性表明,植物不同器官可以成为驯化的目标。尽管种群重测序研究揭示了几种与特定形态相关的基因组选择信号,但这种快速进化和驯化的遗传机制仍有待深入探究。
甘蓝是从数千万年前所有芸薹属植物共同经历的六倍体化事件进化而来的,随后芸薹属祖先经历了广泛的同源基因分化(损失),其特征为亚基因组占优势,两个隐性亚基因组(中等分化亚基因组(MF1)和最多分化亚基因组(MF2))比显性亚基因组(最少分化亚基因组(LF))丢失更多的基因。同源基因是三个亚基因组之间的同源旁系基因,描述了SNPs、InDels和SVs在甘蓝和小白菜三个亚基因组中的偏向分布。甘蓝的转座因子(TEs)数量也高于小白菜,从而导致基因组更大,TEs与SVs的发生有关。
此前,利用短读测序技术构建了甘蓝9个片段的泛基因组,结果表明,甘蓝近20%的基因受到PAV的影响;对长读组装的5个甘蓝高质量基因组进行全基因组比较,进一步揭示了小规模SNPs、InDels和大规模SVs。为了深入了解甘蓝群体内的遗传变异,研究甘蓝驯化和进化的基因组因素,亟需构建一个能更全面代表形态类型的高质量泛基因组。
技术方案
PacBio(或Nanopore)➕Bionano➕Hi-C综合测序
基于图的泛基因组构建与分析
群体重测序(SV-GWAS)➕转录组(eGWAS)➕甲基化数据联合分析
研究意义
高质量基因组组装、泛基因组、基于图谱的甘蓝SV特征以及特定形态型相关SV引入的大规模基因表达变异的发现,为甘蓝类物种的基因组、遗传和转录变异提供了全面剖析图。研究结果加深了对不同甘蓝蔬菜作物快速进化和驯化机制的理解,突出了SV在其中通过调节基因表达所发挥的重要作用,说明了与SV相关的基因表达微调在未来作物育种计划中的重要性。
具代表性形态型甘蓝的高质量基因组组装
为了构建包含全范围遗传多样性的甘蓝泛基因组,研究人员分析了704份全球分布的甘蓝材料重测序数据,涵盖了甘蓝所有不同的形态型及其野生近缘种。以卷心菜JZS作为参考基因组,共鉴定出3,792,290个SNPs和528,850个Indels。利用SNPs构建系统发育树,将704份材料划分为野生甘蓝和羽衣甘蓝(AIL)和叶状头谱系(LHL)3个主要类群。基于系统发育和形态多样性,选择了22个代表性材料进行从头基因组组装。
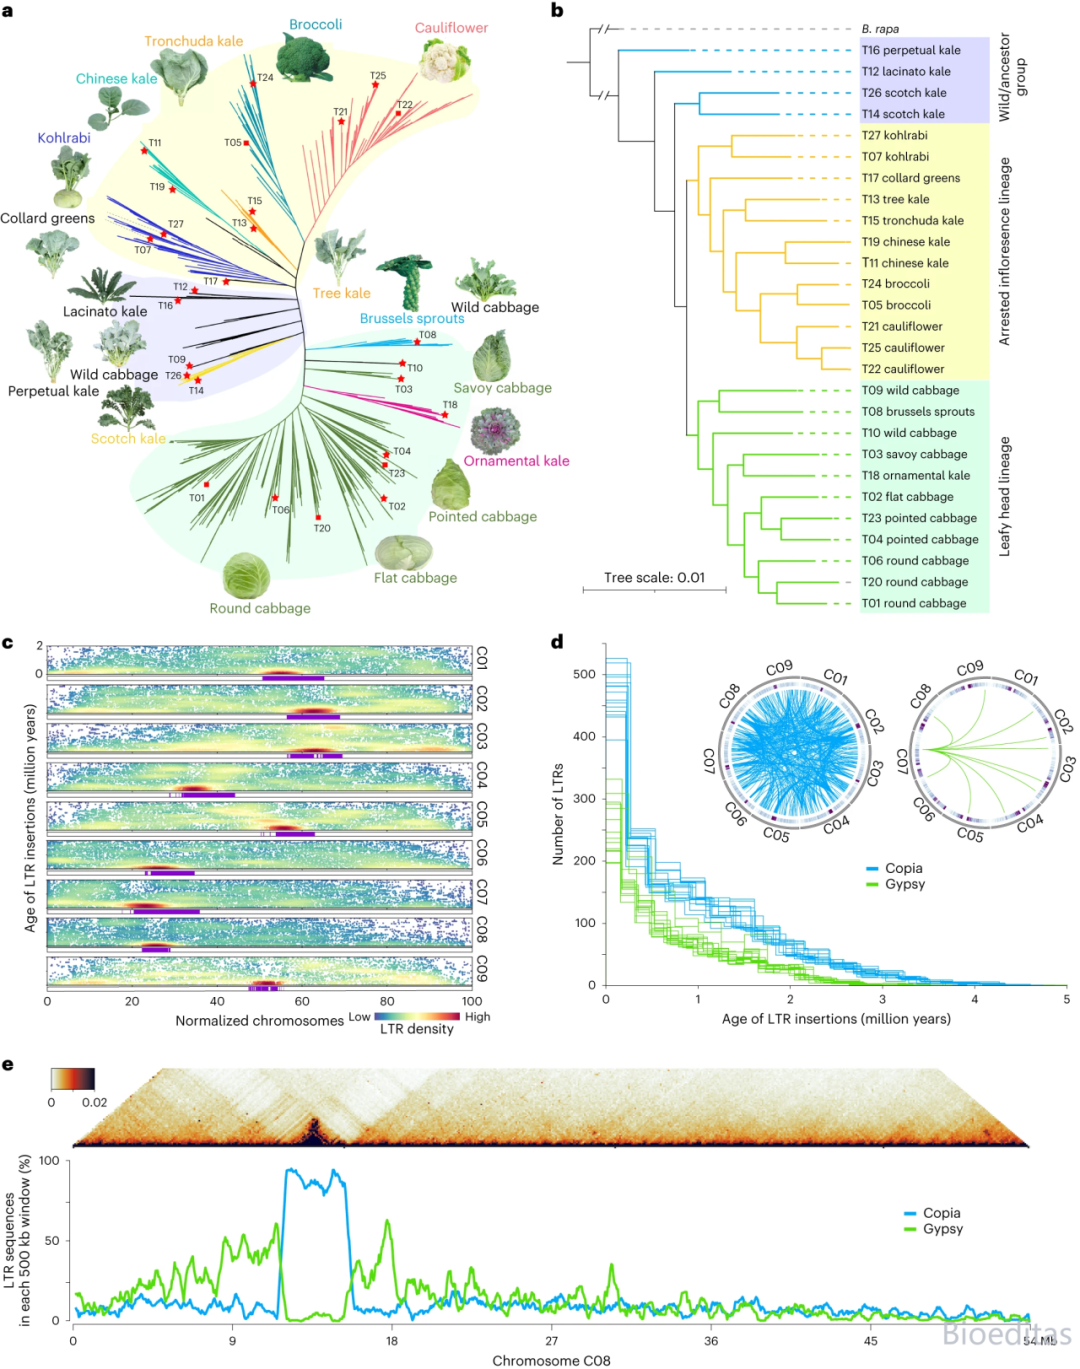
▲甘蓝系统发育分析和转座子元件特征
利用PacBio(或Nanopore)、Bionano和Hi-C测序技术对上述22份甘蓝材料进行基因组测序,获得的总基因组大小在539.87~584.16 Mb之间,平均N50为19.18 Mb,平均98%的序列锚定在9条假染色体上,BUSCO分析评估基因组完整性为98.70%。获得的蛋白质编码基因为50,346~55,003个,平均BUSCO值为97.9%。转座子元件特征分析结果表明,Copia通过维持拓扑相关结构域(TAD)结构在着丝粒的组织或功能中起着重要作用。
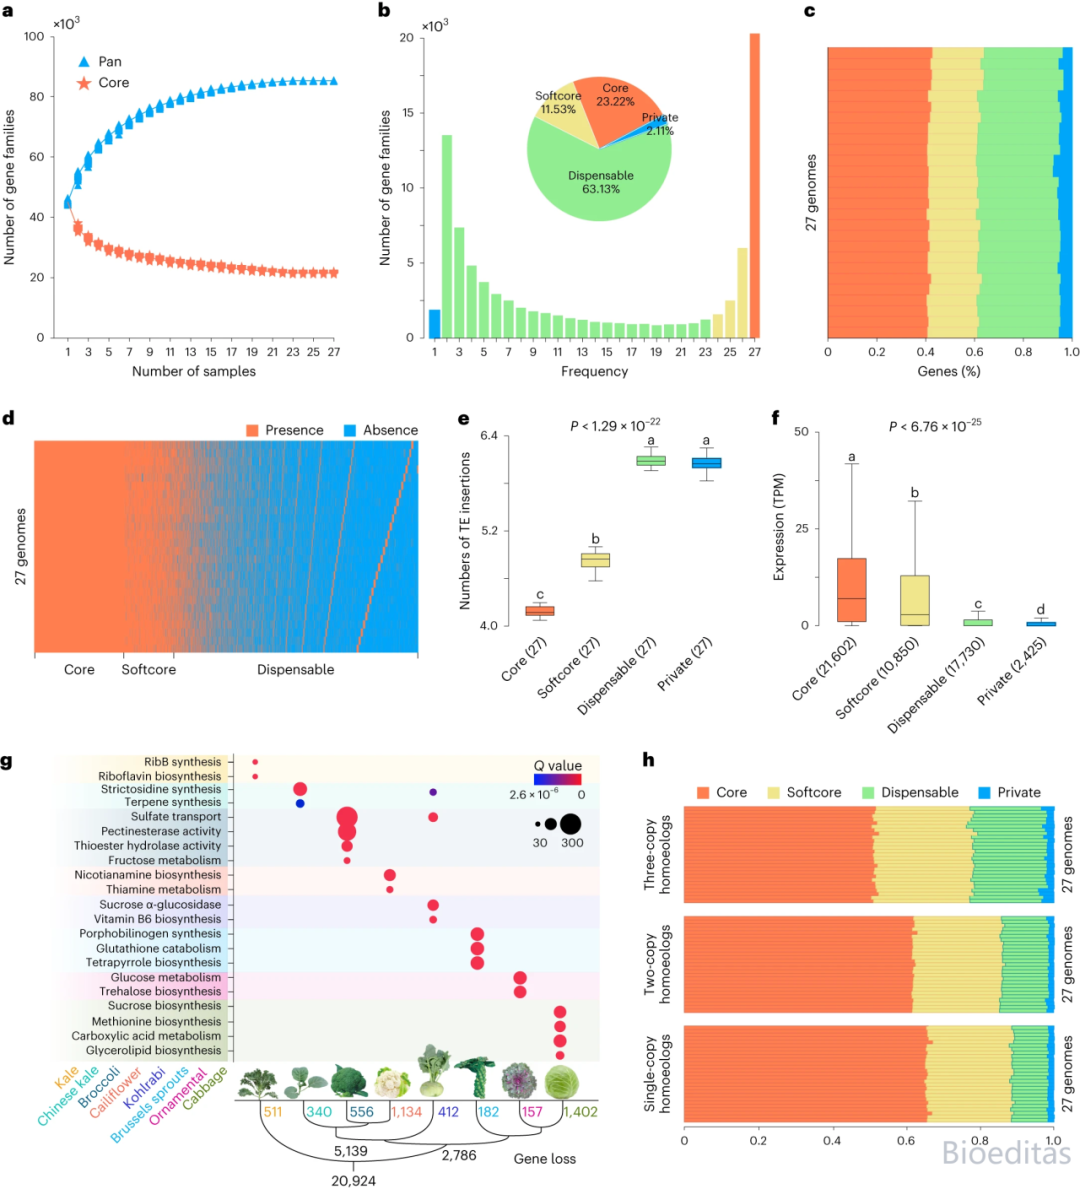
▲27个甘蓝基因组构建的泛基因组
同源基因保留变异
研究人员基于22个新组装基因组和5个已发表的基因组,构建了高质量甘蓝泛基因组,使用OrthoFinder共鉴定了57,137个同源基因家族。
为了研究甘蓝基因组中同源基因的保留变异,进一步进行了直向同源基因分析,共检测到87,444个同源基因家族,其中位于LF、MF1和MF2亚基因组的家族分别为32721个、24902个和22423个。研究发现,与核心基因和次核心基因相比,可变基因和特有基因中的TE插入量显著增加,这表明TE有助于这些基因的遗传变异。44.6%的特有基因和38.2%的可变基因分别属于核心基因和次核心基因,说明同源基因在甘蓝在进化和多样化过程中出现大量的差异基因丢失。
深入研究了甘蓝不同品系/形态中容易丢失的基因,发现共有20,924个同源基因家族在1~14个基因组中丢失,而在15~27个基因组中保留下来,其中2,786个和5,139个基因家族分别在LHL和AIL中完全丢失,但在AIL和LHL形态中出现基因丢失的同源基因家族也富集在与特定代谢物有关的功能中。
不同形态型中特异性缺失的基因富集于各种营养成分的生物合成或代谢功能中,这表明特定的甘蓝作物具有其独特的营养成分或风味。此外,研究人员分析了甘蓝不同形态型的同源拷贝数变异(CNV),揭示了形态型特异性同源基因的丢失,可能是与表达量相关的基因拷贝数变异促进了这些形态的进化。
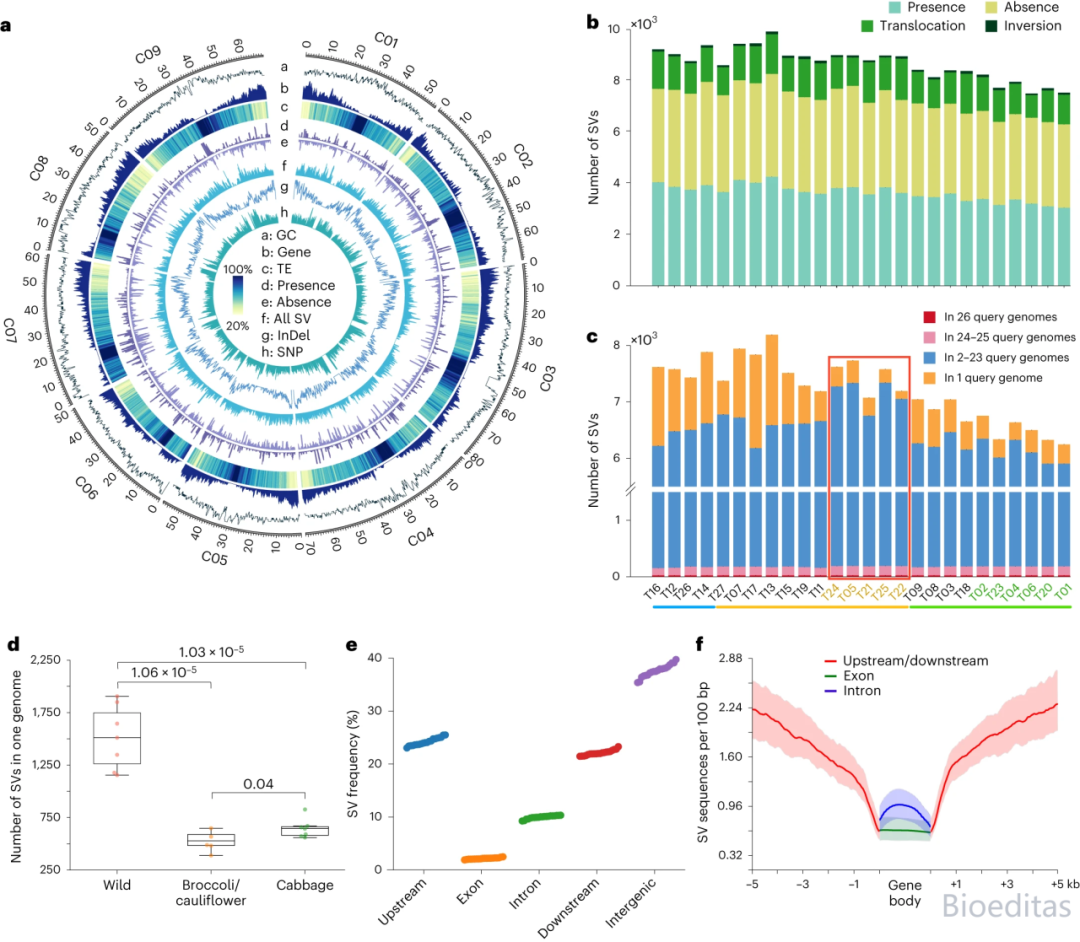
▲27种甘蓝基因组结构变异特征分析
27个甘蓝基因组的结构变异
利用Nucmer将26个甘蓝基因组序列与T10参考基因组进行比对,并将502,701个SVs合并为56,697个非冗余SVs,发现野生甘蓝特有SVs数量显著高于西兰花/花椰菜和卷心菜,表明甘蓝在驯化过程中遗传多样性的广泛丧失。
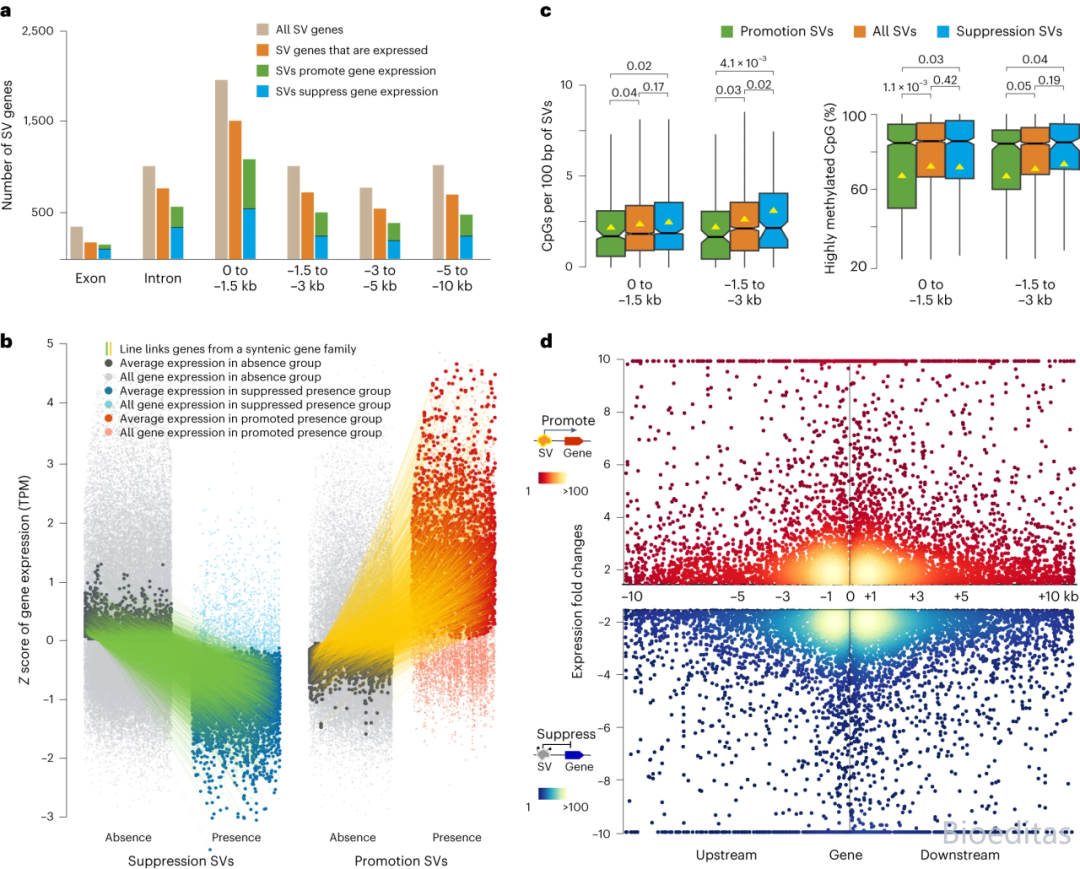
▲通过多基因组比较确定的SV及其对相关基因表达的影响
SV在许多基因中引入表达变异
与基因体相比,SV更多分布在基因的上游和下游区域,表明影响调控序列的SV所受到的选择压力可能比破坏编码序列的SV要小,还发现75%的SVs与TEs重叠。进一步确定了“SV基因”,即在10 kb半径内最接近给定SV的基因。基于同源泛基因组,共确定了11,377个SV基因,其中包括9442个表达基因,根据SV与相应基因的距离将这些表达SV基因分为六组。
根据各SV基因型将27个甘蓝基因组分为两组:将序列较多的基因型定义为“存在”,将序列较少的基因型定义为“缺失”。比较显示,SV基因对基因表达有影响的SV比例很高,随着距离的增加,位于CDS区域的SV比例为83%,位于SV基因上游5-10 kb的SV比例为66%。总的来说,在9442个SV基因中,69%的SV基因与基因表达变化相关,其中与“存在”SV基因型相关受到抑制表达的SV基因明显多于促进表达的SV基因。
还发现甲基化与SV基因的抑制表达密切相关,研究人员检测了3536个抑制型SV“存在”基因型的序列特征,发现它们的CpG位点密度显著高于促进型SV,这些抑制型SV的甲基化水平也显著高于后者。CpG位点密度的增加和甲基化水平的提高,导致抑制SV中高度甲基化CpG岛的数量比促进SV中要多。
除抑制型SV外,还发现了与SV基因表达增加相关的促进型SV。研究人员分析了促进型SVs的序列组成,发现转录因子(TF)结合位点显著富集,包括TCP、MYB、NAC、ERF和GRAS。特异性结构域、促进型SV中序列甲基化水平低和CpG岛较少,可能会导致相应SV基因的转录增加。
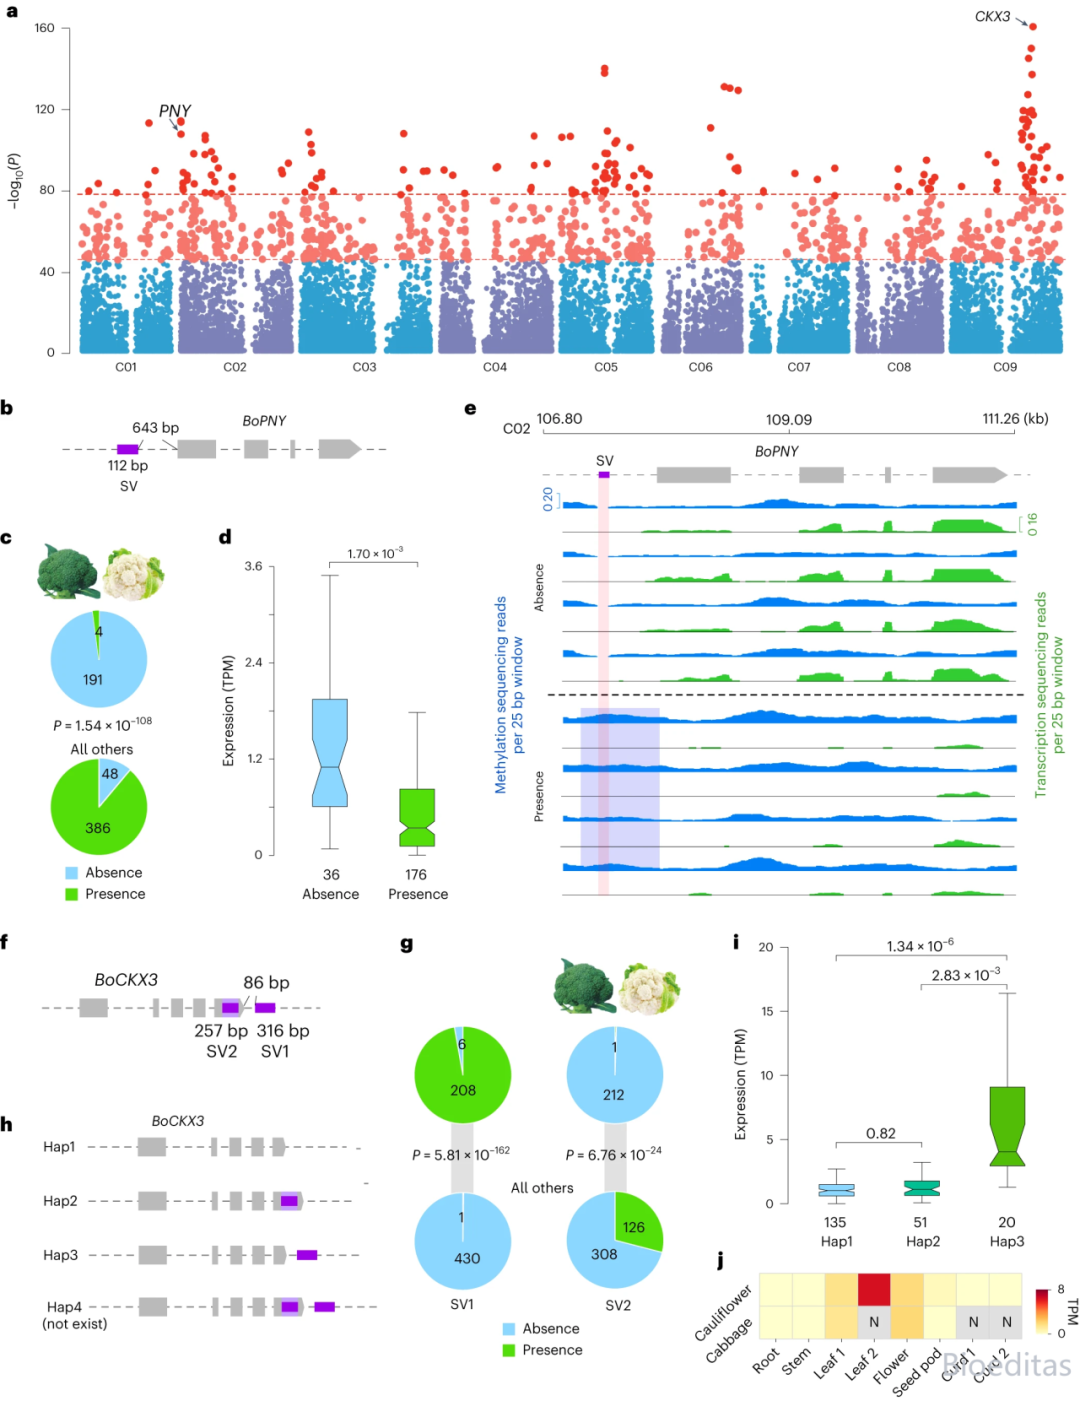
▲GWAS分析确定与花椰菜/西兰花形态相关的SV,以及改变基因BoPNY和BoCKX3表达SVs的细节
与形态型相关的SVs表达变化
采用案例对照GWAS策略鉴定与甘蓝不同形态相关的SVs,以花椰菜/西蓝花为例,获得的1655个SV信号被归入492个SV基因,有378个表达,其中抑制SV122个,促进SV109个。
一个抑制SV位于BoPNY基因翻译起始位点上游643 bp处,该基因具有维持花序分生组织特征和花轮形态发生的功能。BoPNY在“缺失”基因型中的表达明显高于“存在”基因型,“存在”SV及其侧翼序列的甲基化水平均显著高于“缺失”基因型,这与BoPNY的转录水平呈负相关。
还发现了两个最接近BoCKX3基因的促进SVs,细胞分裂素氧化酶(CKX)催化细胞分裂素的降解,从而负调控植物细胞的增殖;ckx3及其同源物ckx5的突变体形成更多的细胞,器官变大。其中一个SV涉及位于BoCKX3翻译停止位点下游86 bp的Helitron型TE插入,214份花椰菜/西兰花中有97%存在SV1,而在对照组中只有0.2%;另一个SV 位于BoCKX3的最后一个外显子,导致其移码突变,在花椰菜/西兰花中,SV2仅存在于0.5%,而在对照组中为29%。这两个SVs形成了4个潜在的BoCKX3单倍型,但在本研究甘蓝群体中不存在包含两个SVs的单倍型。
BoCKX3在单倍型3中的表达量显著高于单倍型1和2,支持该下游SV1的促表达作用。花椰菜/西兰花凝乳发育过程中,BoCKX3在叶片中高表达,而在凝乳等其他器官中表达量并不高。一种假设是,BoCKX3负调控叶片生长,从而为快速凝乳节省能量。这些例子证明了SVs对基因表达的双向作用,特别是与花椰菜/西兰花的形态型相关。
研究人员还以叶状头为特征卷心菜为案例组进行了GWAS分析,发现了两个与BoKAN1位点最接近的促生SV1和SV2。SV1由一个970 bp的PIF/Harbinger插入物引入,该插入物在卷心菜种质中处于强烈负选择状态;SV2由一个157 bp的Helitron插入物引入,该插入物在卷心菜种质中也处于负选择状态。在这两种SVs形成的4个单倍型中,BoKAN1在缺乏SV1的单倍型1和2中的表达量显著低于含SV1的单倍型3和4。还发现了一个位于BoACS4附近的促进SV,编码参与植物激素乙烯生物合成的关键调控酶,该插入物在卷心菜中受到强烈的负选择,在缺乏这一插入物的甘蓝品种中BoACS4的表达量明显低于含有该插入物的对照组品种。
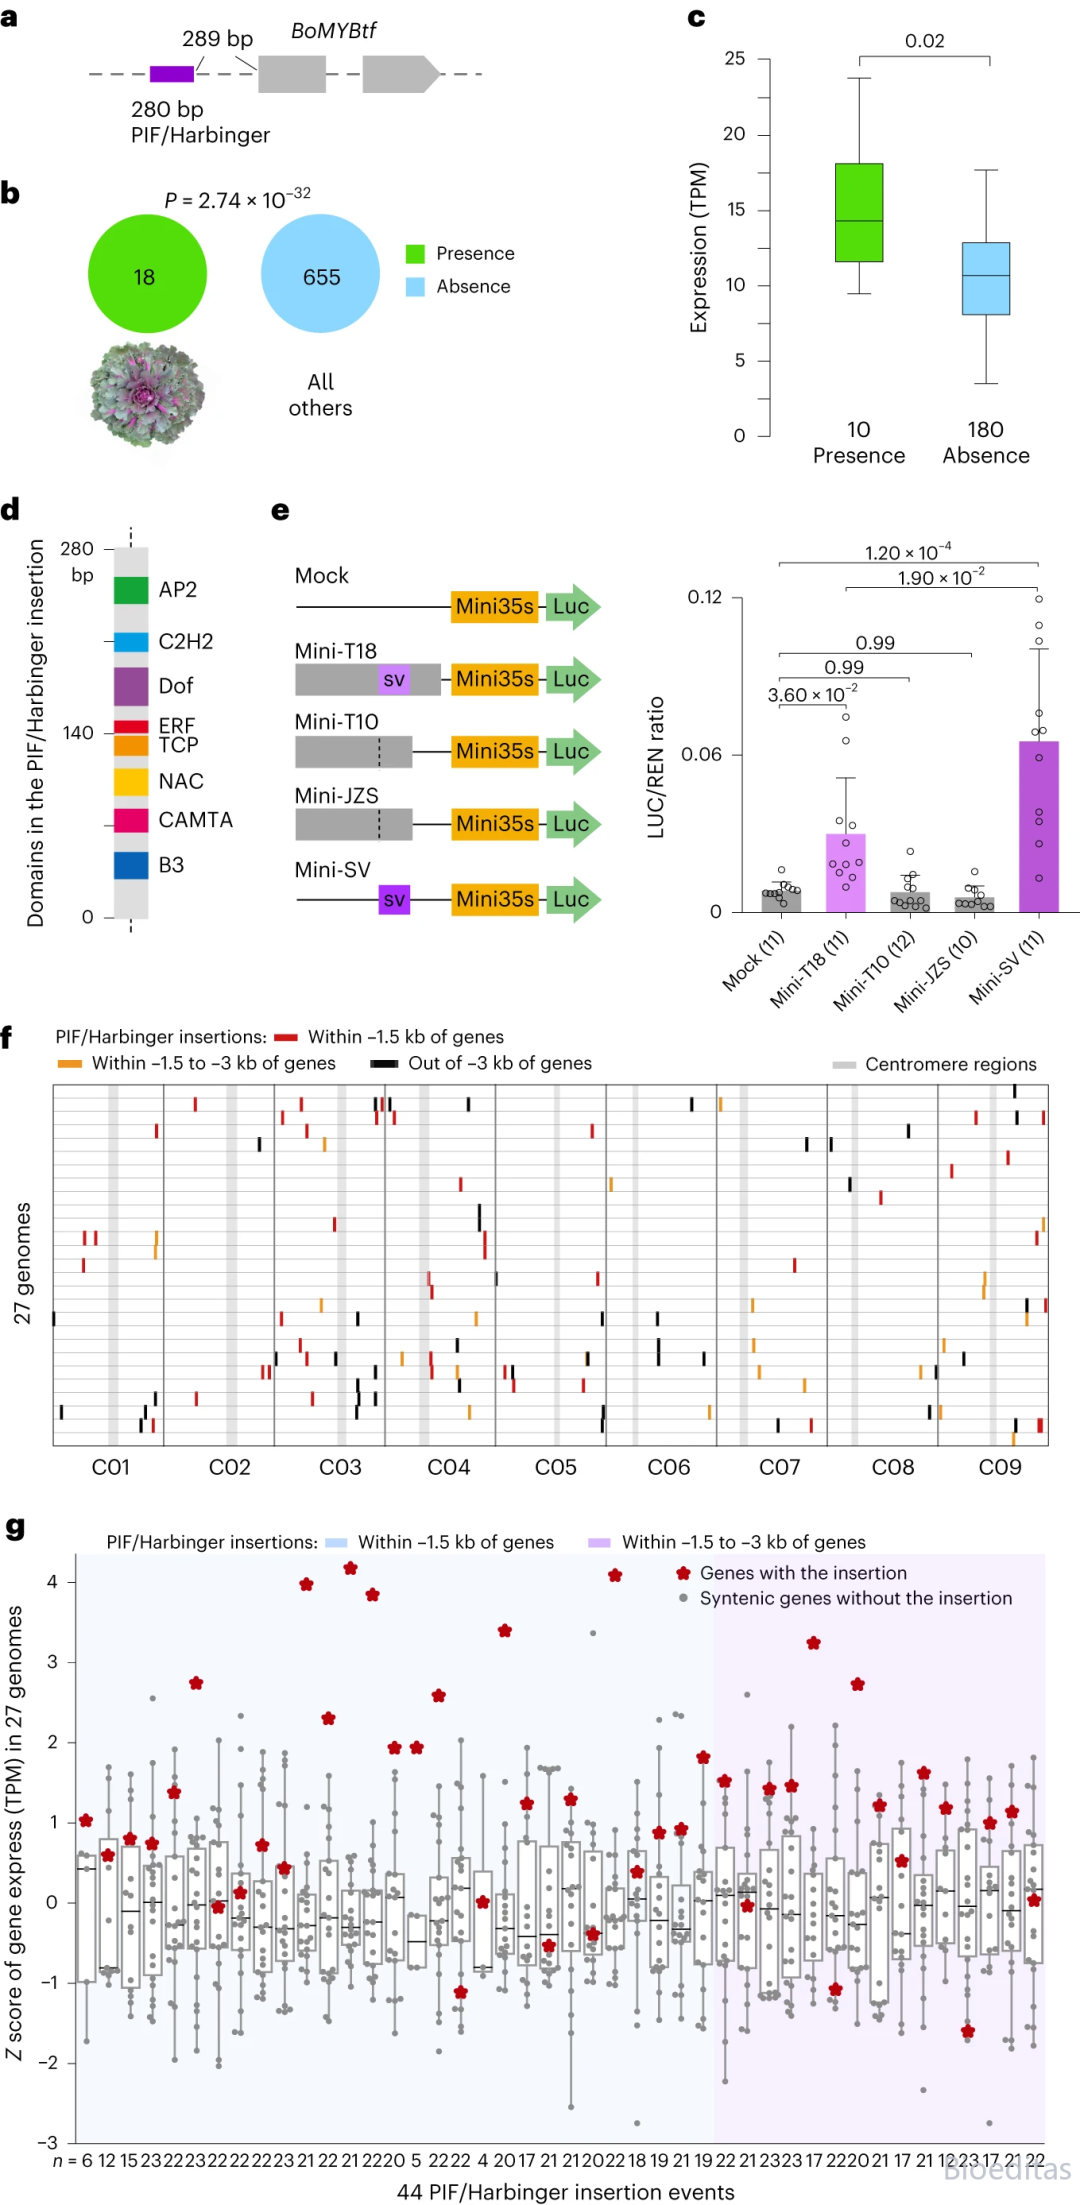
▲由PIF/Harbinger型TE插入产生的SV促进了甘蓝中BoMYBtf的表达;启动子区域插入PIF/Harbinger的27个甘蓝材料中,基因表达水平有所提高
另一个SV是一个280 bp的TE(PIF/Harbinger)插入,位于MYB TF翻译起始位点上游,存在于所有18个观赏甘蓝材料中,但在其他材料中并不存在。在此之前,MYB TFs被发现与甘蓝类植物的紫色性状有关。BoMYBtf在观赏甘蓝中的表达量显著高于其他形态型,表明TE的插入与BoMYBtf的表达促进有关。在这个PIF/Harbinger TE序列中也发现了大量富集于促进SVs的TF结合位点(即NAC、TCP和ERF),研究人员假设这些TF结合位点与TE插入有关,是促进BoMYBtf转录活性的因果因素。
这种PIF/Harbinger TE在观赏甘蓝中对BoMYBtf的转录促进作用通过荧光素酶报告实验得到了进一步验证。简单来说,将观赏甘蓝T18(含TE)、野生甘蓝T10(不含TE)、卷心菜JZS T20(不含TE)和SV (TE本身)的MYB启动子融合在pMini-LUC中作为报告基因,并转染到烟草叶片中。发现mini-T18和mini-SV的LUC/REN比值明显高于其他样品,而mock、mini-T10和mini-JZS之间无显著差异,证实了该PIF/Harbinger TE的促表达作用。
此外,在所有27个甘蓝基因组中研究PIF/Harbinger TE发现,有60个插入基因位于3 kb的侧翼区域,其中44个相关基因得到了表达。在27个基因组中比较它们的表达,31个含有插入的基因的表达水平高于没有插入的基因,而其余13个基因的插入并未导致表达水平的提高。这些结果进一步支持了该PIF/Harbinger TE插入在甘蓝基因组中的共同转录促进功能。

