
经典案例 | 赤豆高质量参考基因组及重测序研究揭示其进化驯化过程和关键农艺性状形成机制
近期,北京农学院植物科学技术学院、中科院遗传与发育研究所和澳大利亚莫道克大学联合通讯,在Plant Biotechnology Journal上发表了研究成果,报道了高质量染色体水平赤豆参考基因组,对包括野生和栽培在内的322个不同的赤豆品种进行全基因组重测序,还进行了比较基因组学和关键农业性状的全基因组关联分析,以研究其进化和驯化过程。
文章题目
Chromosome-level reference genome and resequencing of 322 accessions reveal evolution, genomic imprint and key agronomic traits in adzuki bean
第一作者:Liwei Chu, Kai Yang, Chunhai Chen, Bo Zhao
通讯作者:Rajeev K Varshney, Zhixi Tian, Jianbo Jian, Ping Wan
通讯单位:北京农学院植物科学技术学院、中科院遗传与发育研究所和澳大利亚莫道克大学联合通讯
杂志:Plant Biotechnology Journal
影响因子:13.8/Q1
文章链接:
https://doi.org/10.1111/pbi.14337
研究背景
赤豆(Vigna angularis var. angularis)在中日韩、菲律宾、加拿大等三十多个国家均有种植,种子富含优质蛋白质、淀粉、矿物质元素、维生素和膳食纤维;赤豆还拥有利尿、降血糖作用以及抗癌活性等特性,在传统中药里具有很高的药用价值;且由于其生长期短、基因组小,非常适合作为了解豆类生物学的模式物种。
栽培赤豆被认为是从野生赤豆(Vigna angularis var. nipponensis)驯化而来,有研究认为赤豆起源于中国,最早的驯化证据可追溯到12,000年前。在7000年前的中国浙江跨湖桥遗址中就发现了作为一种植物性食物的赤豆,基于形态学证据及日本原产地,赤豆被认为是由具有多个地理起源的四个祖先驯化而来的。赤豆商业品种主要选自优良地方品系,导致栽培种群的遗传多样性有限,现代基因组工具的缺乏和对现有基因组信息的有限利用对赤豆育种造成了严重制约。当务之急是在更广泛的种质收集中确定基因组变异,并建立其与重要表型的关联,以便进行有针对性的育种改良。
技术方案
Illumina➕PacBio➕Hi-C综合测序
全基因组重测序(WGRS)
主成分分析(PCA)➕系统发育分析➕种群结构分析
比较基因组学分析
关键农业性状全基因组关联研究(GWAS)
研究意义
研究阐明了赤豆驯化性状的遗传基础,对十四个性状进行的基因组分析确定了与红色种皮形成和其他农艺性状相关的关键基因,还成功验证了这些基因的功能,为今后赤豆育种工作提供了重要的基因组资源支持,也为加速开发优良赤豆栽培品种提供了理论依据。
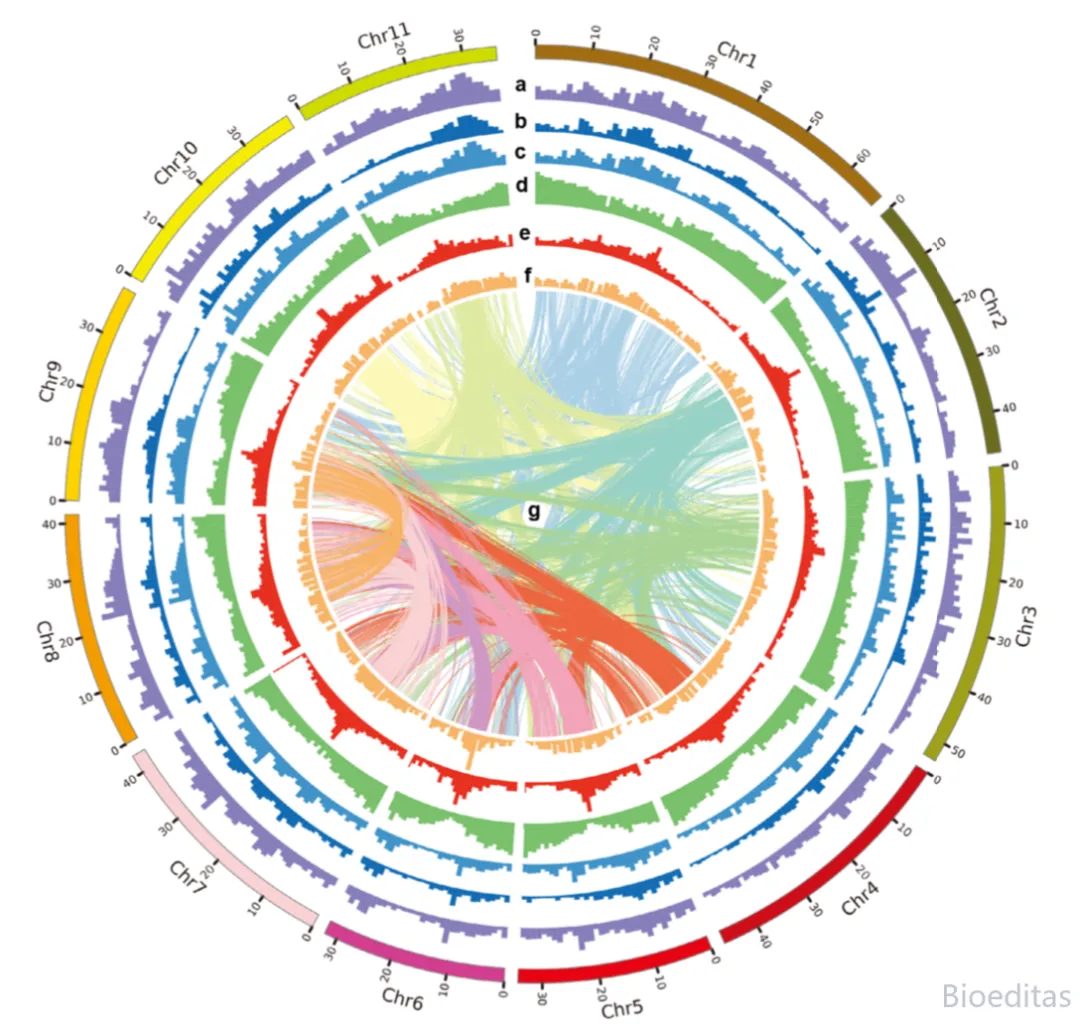
▲Jingnong6的基因组组装
利用Illumina、PacBio和Hi-C综合技术对赤豆栽培种“Jingnong6”进行了测序,组装后的基因组大小为489,771,011 bp,由328个contigs.组成,contig N50为16,063,027 bp。Hi-C技术共产生了120.4 Gb数据,97.8%(479.1 Mb)的数据锚定到了11条染色体上,scaffold N50为41.6 Mb。与之前发表的基因组组装相比,此次更新的基因组组装将连续性指标大幅提高了421倍,BUSCO评估基因组组装质量很高且完整(98.8%)。
共注释了286,431,291 bp的重复序列,占基因组的59.79%,通过对来自12个组织样本的RNA-seq数据进行从头预测和基于同源物的搜索,共预测出52,643个转录本,并在赤豆基因组中鉴定出了32,738个高置信度的蛋白质编码基因,BUSCO显示蛋白质完整性为92.3%,99.93%的预测蛋白质编码基因得到了功能注释。
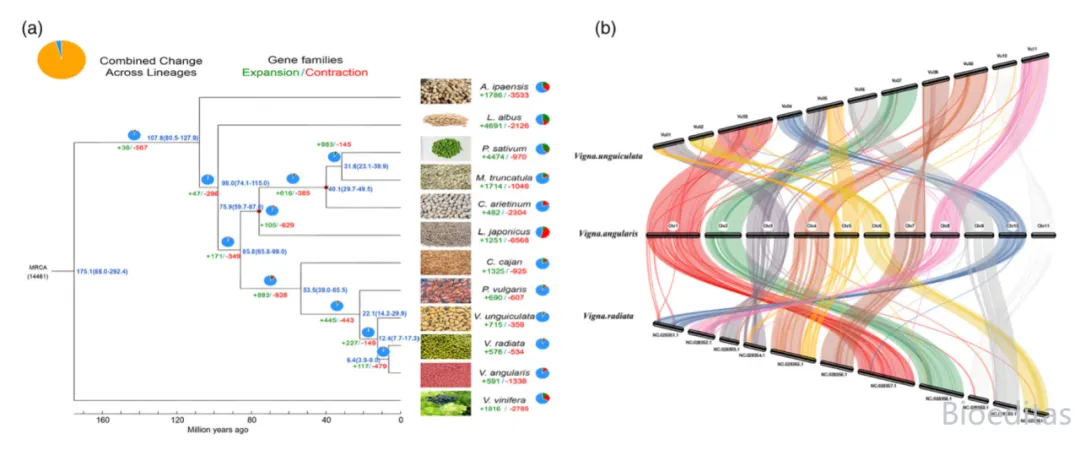
▲赤豆、绿豆和豇豆的比较基因组学分析
为了了解基因家族进化并获得全面的系统发育分析,研究人员确定了赤豆和其他11个物种之间特有和共享的基因家族,包括:野生种花生(Arachis ipaensis)、白羽扇豆(Lupinus albus)、豌豆(Pisum sativum)、 蒺藜苜蓿(Medicago truncatula)、鹰嘴豆(Cicer arietinum)、百脉根(Lotus Japonicus)、木豆(Cajanus cajan)、菜豆(Phaseolus vulgaris)、豇豆(Vigna unguiculata)、绿豆(Vigna radiata)和葡萄(Vitis vinifera)。共有31,332个基因(95.7%)被聚类为16,641个基因家族,其中15,795个基因家族为所有12个物种共有,有5147个基因的846个正交群则为赤豆所特有。
根据605个单拷贝基因家族并结合分化时间,将赤豆和绿豆聚类在系统发生树的同一分支中,进一步证明了豇豆属内部的分化。据估计,豇豆属与 菜豆属的分化发生在大约22.10Mya;红豆与绿豆的分化发生在距今约6.40Mya,而与豇豆的分化发生在距今7~39Mya。
研究人员比较了赤豆与其他基因组中的1338个收缩基因家族和591个扩张基因家族,后者主要涉及抗坏血酸和醛酸代谢、谷胱甘肽代谢和病原体相互作用等过程。通过对赤豆、豇豆和绿豆基因组进行同源搜索和比较,发现除3号和5号染色体外,所有染色体在染色体水平上都存在同源关系和共线关系,表明赤豆的3号和5号染色体发生了断裂和融合。
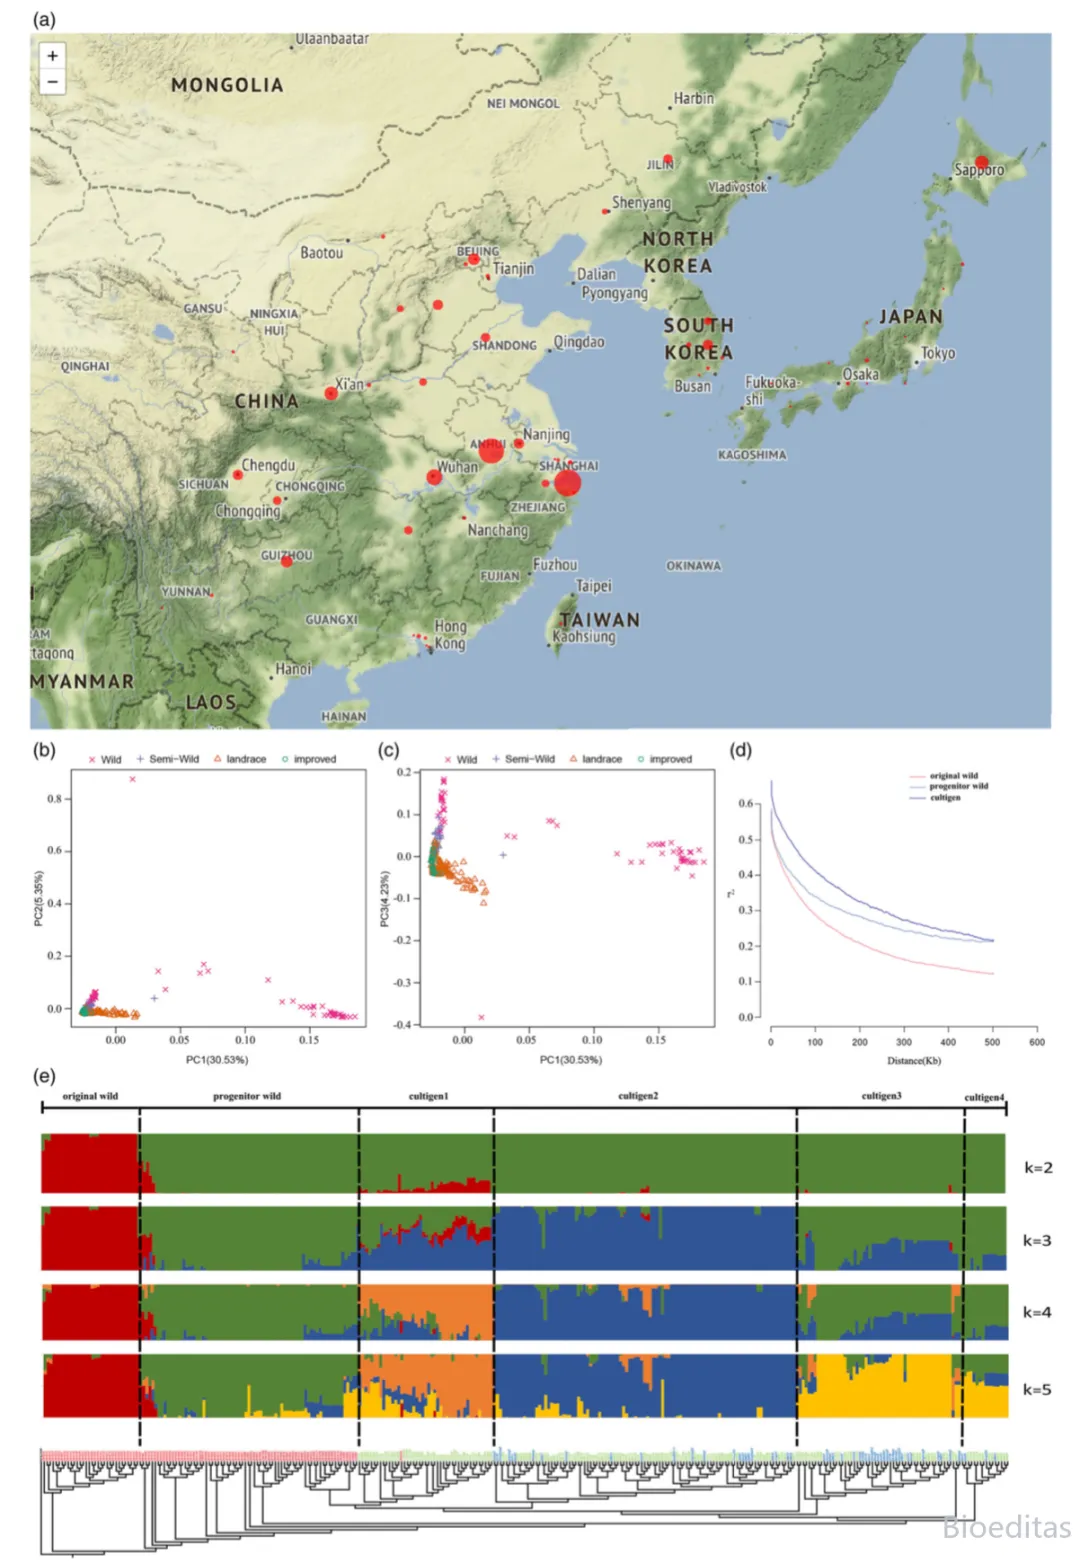
▲322个野生和栽培赤豆材料的种群结构
研究人员对322个赤豆品种的基因组进行了重测序,包括67个野生品种、39个半野生品种、160个地方品种和56个改良品种,半野生赤豆的形态特征介于栽培赤豆和野生赤豆之间,地方种和改良品种是栽培种。共鉴定出了1,352,825个SNPs,其中106,034个位于蛋白质编码基因内;此外,在上游或下游区域检测到73,694个SNPs,其余SNPs属于基因间区。
通过主成分分析(PCA)、系统发育树构建和种群结构分析,研究了322个品种之间的进化关系,清楚地将野生赤豆品种与半野生品种和栽培品种区分开来,只有少数野生品种与半野生品种聚集在一起。赤豆品种的遗传图谱显示有六个不同的groups。将野生赤豆样本分为两个不同的组,“原始野生”群体有32个样本,仅分布于中国山区;而来自中国、尼泊尔、韩国和日本的其他35个野生样本与38个半野生样本聚类,形成另一个不同的组,称为“祖先野生”组。利用ADMIXTURE软件估计发现,CV误差在K=2时达到最小值(最佳拟合),表明“原始野生”与其他类型的加入者之间存在更大的差异;但K=5被认为是解释基于表型性状的种群分类的最佳拟合值。
栽培赤豆被分为四个不同的亚组(“栽培种1~4”), 遗传多样性的减少表明,赤豆驯化可能是一个缓慢的过程,从“原始野生”过渡到“祖先野生”,最后再过渡到“栽培种”。成对FST分析表明,与“祖先野生”和“栽培种”相比,“原始野生”和“祖先野生”之间的分化程度更高。驯化和选择过程导致种群内部遗传多样性减少,同时加强了遗传位点之间的联系。因此,驯化程度越高、选择强度越大的种群,其连锁不平衡(LD)的衰减速度通常越慢。从 “原始野生”种群到“祖先野生”种群,最后到“栽培种”(包括地方栽培种和改良种),LD衰减率逐渐降低,这表明“祖先野生”种群处于LD衰减的中间状态,介于“原始野生”种群和“栽培种”种群之间。
赤豆的驯化是一个从野生到栽培的渐进过程,“原始野生”种群主要分布在秦岭-淮河以南的山区,且“祖先野生-中国”的遗传多样性高于“祖先野生-韩国”和“祖先野生-日本”。这些结果表明,中国长江中下游可能是赤豆的驯化中心,也许它是从中国南方地区迁移到中国北方,随后传播到朝鲜半岛和日本的。
▲驯化性状中的全基因组关联分析和选择性扫描
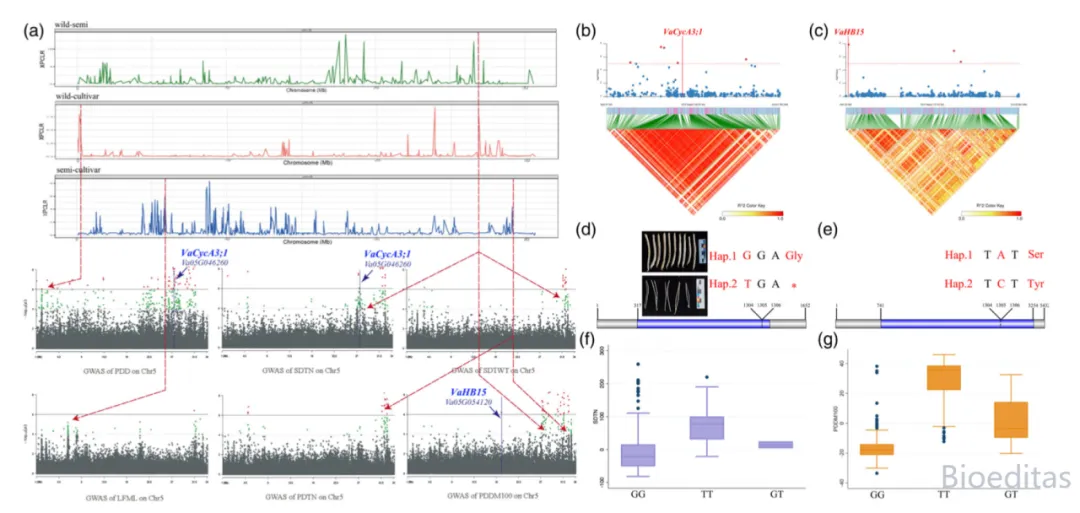
农艺性状与驯化密切相关,但其调控机制总是很复杂。在这项研究中,研究人员对与驯化相关的性状(包括豆荚开裂、产量性状、生长期等)进行了全基因组关联研究。通过整合野生豆和栽培豆之间的选择信号,以及5号染色体上GWAS的正相关信号,确定了参与赤豆驯化的关键基因。位于候选基因 VaCycA3;1(Va05G046260)CDS 区域的一个非同义SNP(Chr5:27353701, G/T)经过选择后被发现与每株总种子数(SDTN)和生长习性(直立或缠绕)相关。该SNP的两个不同单倍型(Chr5:27353701, G/T)与多个农艺性状有关,如Hap.1(GG)与低SDTN和豆荚开裂有关,Hap.2(TT))与高SDTN和豆荚不开裂有关。该非同义SNP导致密码子从GGA变为终止密码子TGA,从而导致翻译过早终止。研究结果表明,VaCycA3;1在赤豆的驯化过程中发挥了重要作用。
候选基因VaHB15(Va05G054120)与豆荚成熟期有关,该基因中的一个非同义SNP在驯化过程中表现出强烈的正选择。该SNP的两个基本单倍型与多个农艺性状有关,Hap.1(GG)与较短的成熟时间有关,而Hap.2(TT)与较长的成熟时间有关。Va05G054120编码的HD-Zip III同源物先前被报道对拟南芥和杨树的维管束发育至关重要,本研究是首次报道其与生长期具体相关的功能。
▲变种赤豆种皮颜色的全基因组关联分析
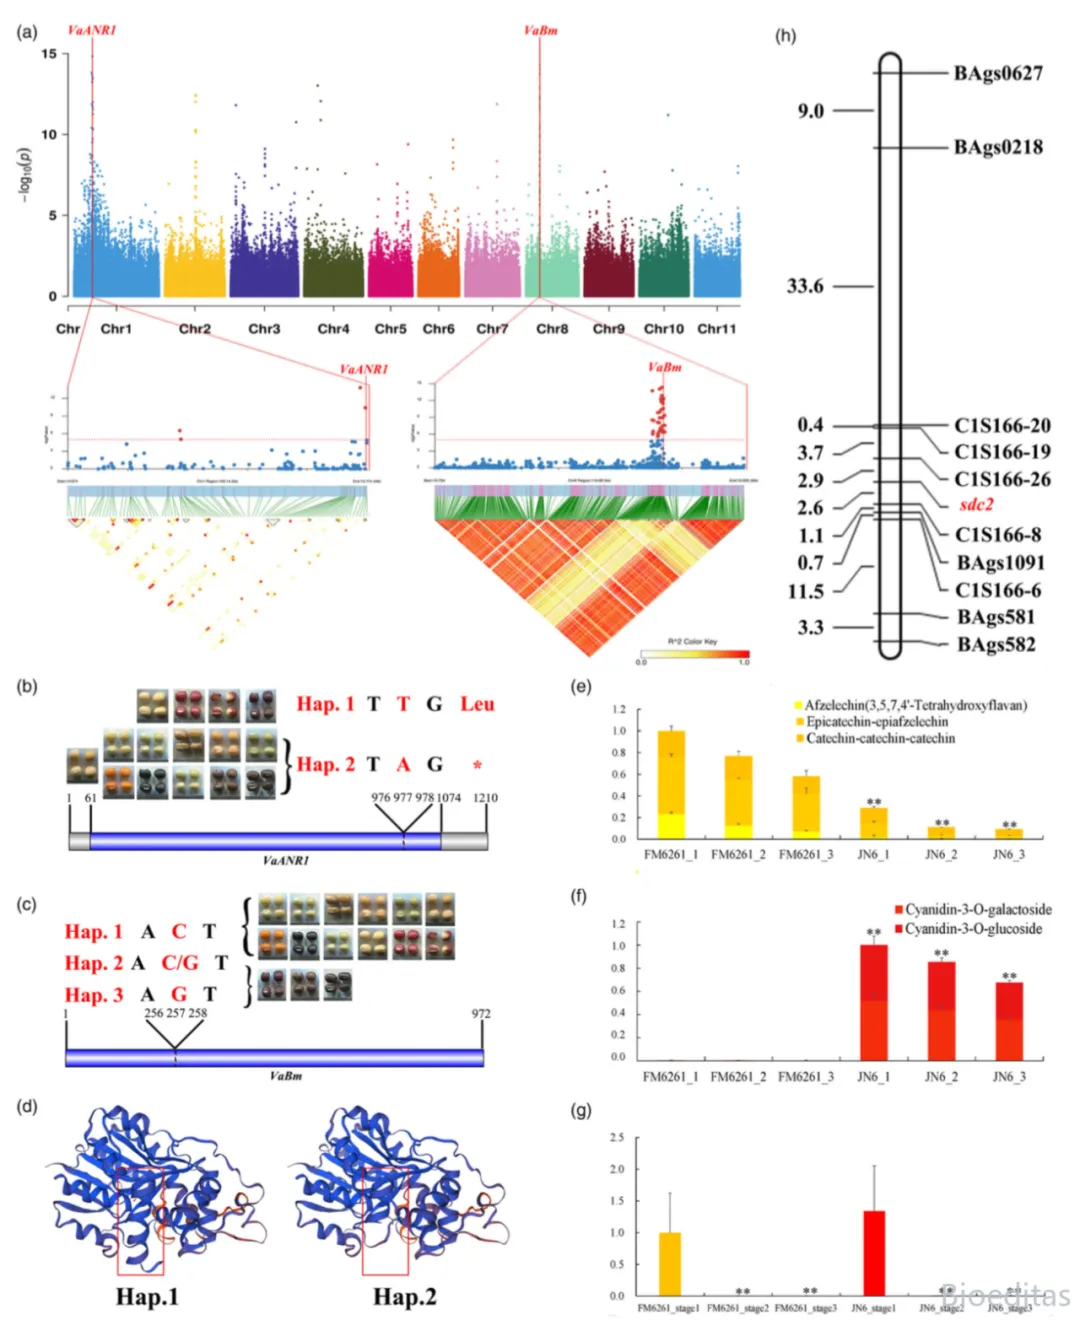
红色种皮是绝大多数栽培赤豆的显著特征,而几乎所有野生赤豆的种皮都是灰皮黑斑。基于322个基因变异数据的GWAS发现了两个与种皮颜色有显著关联的基因组区块,1号染色体上最重要的基因组区块包含20个基因簇,峰值SNP位于 VaANR1(Va01G021240)基因的外显子内,该基因编码一种花青素还原酶。鉴定出的SNP是一个停止-增益变异(TTG到TAG),可诱导转录本过早终止。正如预测的那样,翻译的过早终止可能会导致蛋白质三级结构的构象改变。该SNP导致产生两种不同的单倍型,携带参考单倍型(Hap.1: TT)品种的种皮着色特征为红色、红皮黑色斑纹、象牙色皮红色斑纹或完全为象牙色;相反,携带alternate单倍型(Hap.2:AA)的品种则表现出不同的种皮颜色。
为了进一步探讨VaANR1与种皮颜色之间的关系,研究人员对其进行了功能验证,发现在Jingnong6和FM6261中,VaANR1的表达水平从第1期到第3期均显著下降;在种皮着色方面,黄烷醇的含量下降,而FM6261中所有化合物的含量在每个阶段都高于Jingnong6;在FM6261中几乎没有积累花青素,但在Jingnong6中却有明显的合成。为了进一步确定VaANR1与种皮颜色性状的相关性,研究人员用90个SSR标记分析了CCA026(红色)×FM6261(浅棕色)的F3群体,有10个标记(11.1%)显示与种皮颜色基因sdc2有关联。
研究发现,红色和浅棕色品种之间种皮颜色的差异与含有VaANR1的基因组区域有关,然而在表达水平上,红色Jingnong6与其种皮为浅棕色的突变体FM6261之间没有观察到明显差异。这表明VaANR1的变异会导致翻译提前终止,进而影响黄烷醇和花青素的合成,而非转录水平,黄烷醇和花青素的含量最终决定了种皮的颜色。
另一个候选基因VaBm(Va08G018610)编码一种含有逆转录转座子gag结构域的蛋白质,它位于第8号染色体上,与黑斑种皮相关。VaBm的外显子区域共包含 8 个 SNP,峰值SNP(Chr8:10806223,C/G)引起Thr(ACT)到Ser(AGT)的氨基酸变异,产生了三种单倍型:Hap.1(CC)、Hap.2(CG)和 Hap.3(GG)。带有Hap.1(CC)的品种种皮没有斑点,而带有Hap.2(CG)和Hap.3(GG)的品种种皮有黑色斑点。地方品种GM276和GM633的红色种皮上分别出现了红色和黑色斑点。等位基因特异性聚合酶链反应(AS-PCR)确定了GM276和GM633杂交的F2群体中VaBm变异与种皮特征之间的相关性。基因VaBm中的SNP与黑斑/无斑种皮性状的共分离显示了其在形态鉴定方面的巨大潜力。总之VaANR1基因的变异与种皮着色有关,而VaBm基因的变异则与赤豆的种皮花纹有关。

