
经典案例 | 染色体水平基因组研究揭示香蕉果皮开裂和花青素生物合成机制
近期,中国科学院华南植物园在Horticulture Research上发表了研究成果,首次报道了紫苞芭蕉和朝天蕉染色体水平高质量基因组,解析了其果皮开裂的原因,还鉴定了与花青素生物合成途径相关的基因。
文章题目
Chromosome-level genome assemblies of Musa ornata and M. velutina provide insights into pericarp dehiscence and anthocyanin biosynthesis in banana
第一作者:Tian-Wen Xiao
通讯作者:Zheng-Feng Wang, Hui-Run Huang
通讯单位:中国科学院华南植物园
杂志:Horticulture Research
影响因子:8.7/Q1
文章链接:
https://doi.org/10.1093/hr/uhae079
研究背景
草本植物香蕉(Musa spp.)约有70个物种,分布于亚洲和大洋洲的热带和亚热带地区。目前的香蕉品种都是纯种小果野蕉(M. acuminata)或是小果野蕉与与其他几种香蕉的杂交品种,但一些栽培香蕉的祖先仍有待探索,还包括许多重要的观赏物种。随着第三代测序技术的快速发展,越来越多的高质量植物基因组被组装和发布,为作物驯化和观赏植物的进步提供了新见解,但香蕉栽培品种及其野生近缘种和观赏种的基因组资源仍然缺乏。
紫苞芭蕉(Musa ornata [Mo])和朝天蕉(Musa velutina [Mv])属于芭蕉科芭蕉属植物,与小果野蕉关系密切。Mo也被称为开花香蕉或观赏香蕉,原产于孟加拉国、缅甸和印度东北部,在热带国家广泛种植,其特征包括淡紫色苞片、黄色小叶尖,绿色花梗和直立花序;Mv通常被称为粉蕉,原产于缅甸和印度东北部,在热带国家种植,果实呈鲜艳粉红色,有毛,成熟后会自行剥落。除了观赏价值,它们的果实可作为当地人的食物来源。这些特性使二者成为生成高质量基因组以帮助未来分子育种工作的理想候选品种。
观赏植物的自脱皮(或果皮开裂)果实比非自脱皮果实有可能吸引更多动物,对种子在野外的传播有利,但也会为园艺工作带来不便。有研究认为果皮开裂与中层变性有关,中层是细胞壁的最外层,富含果胶类多糖,在维持植物组织和器官的结构完整性方面发挥着至关重要的作用。多聚半乳糖醛酸酶(PG)基因编码的酶通过催化水解聚半乳糖醛酸链中的α-(1-4)糖苷键来降解植物细胞壁中的果胶,从而产生半乳糖醛酸单体和低聚糖作为降解产物。这一过程与花药开裂、果实成熟和开裂以及叶、花和果实的脱落密切相关。此外,纤维素是植物细胞壁,特别是初级和次级细胞壁的主要结构成分。纤维素酶(CEL)基因编码降解纤维素的酶,它们在许多植物物种的果实开裂过程中都会上调。
据报道,朝天蕉等栽培品种都存在果皮开裂现象,但其果皮开裂的分子机制尚未得到研究。且Mo和Mv的彩色苞片和果实具有很高的观赏价值,花青素在果皮颜色形成过程中起着重要作用,而其生物合成途径的调控尚不清楚。
技术方案
Illumina➕ONT➕Hi-C综合测序分析
全基因组复制(WGD)分析
差异表达基因(DEG)分析
研究意义
紫苞芭蕉和朝天蕉染色体水平基因组组装为了解香蕉果皮开裂和花青素生物合成的机制提供了丰富的理论资源,为香蕉等作物和观赏植物的遗传研究和改良育种奠定了坚实基础。
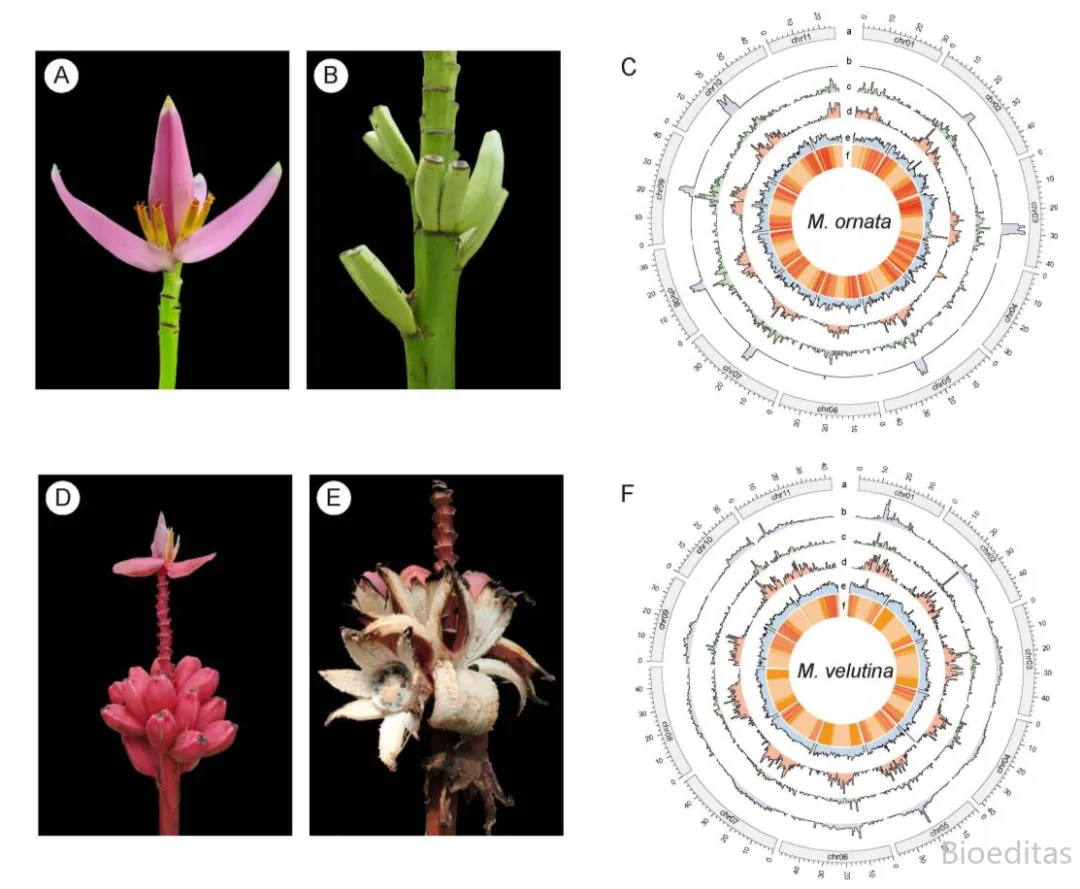
▲A和B:Mo的花和果实形态特征
D和E:Mv的花和果实形态特征
C和F:Mo和Mv基因组特征
利用Illumina、ONT和Hi-C对紫苞芭蕉(以下称Mo)和朝天蕉(以下称Mv)材料进行了综合测序,最终获得大基因组大小分别为427.85 Mb(36 scaffolds)和478.10 Mb(34 scaffolds),scaffold N50 的长度分别为38.31 Mb和42.77 Mb,都被锚定在11条假染色体上,重复序列分别占紫苞芭蕉和朝天蕉基因组总数的46.70%和50.91%。BUSCO分析,Mo和Mv基因组都具有较高的完整性,分别为98.08%和98.51%。
将Mo、Mv和其他8个物种的蛋白序列聚类并归为34,473个基因家族,在Mo基因组中鉴定出24,193个基因家族,5种芭蕉属植物共有14,649个基因家族,Mo有1052个特有基因家族,多于Mv(519个)。分别对Mo和Mv的特有基因家族进行了FO分析,结果表明,Mo中的特有基因家族在“硫转移酶活性”和“转移酶活性,含硫基团转移”中富集最为显著,而Mv中的特有基因家族在“双糖代谢过程”和“低聚糖代谢过程”中富集最为显著。
为了探索Mo和Mv的进化关系,研究人员在10个物种中鉴定了2,641个单拷贝基因家族,并利用这些基因进行了系统发育树的重建和分化时间的估计。分析表明,Mo和Mv是姊妹种,与小果野蕉关系密切。二者之间的分化时间为6.87 Mya,它们自8.67 Mya从小果野蕉中分化出来。Copia在小果野蕉和Mo中的插入分别在0.4 Mya和0.8 Mya达到峰值,而Mv在1.3 Mya达到峰值,第二个高峰出现在0.5 250 Mya。
基因家族扩张和收缩分析结果显示,Mo基因家族分别有834个和618个扩增和收缩;Mv中有370个和2943个基因家族分别经历了扩张和收缩。对显著扩张的基因家族进行GO分析发现,Mo基因主要富集在“结构分子活性”、“核糖体结构成分”和“肌动蛋白结合”等terms中;而Mv基因在“GTPase活性”、“单加氧酶活性”和“染色质”等terms中显著富集。相比之下,显著收缩基因家族的GO分析表明,Mo中的基因主要富集在“atp酶偶联跨膜转运蛋白活性”和“初级活性跨膜转运蛋白活性”等terms中,而Mv中的收缩基因则富集在“结构分子活性”和“GTP结合”等terms中。
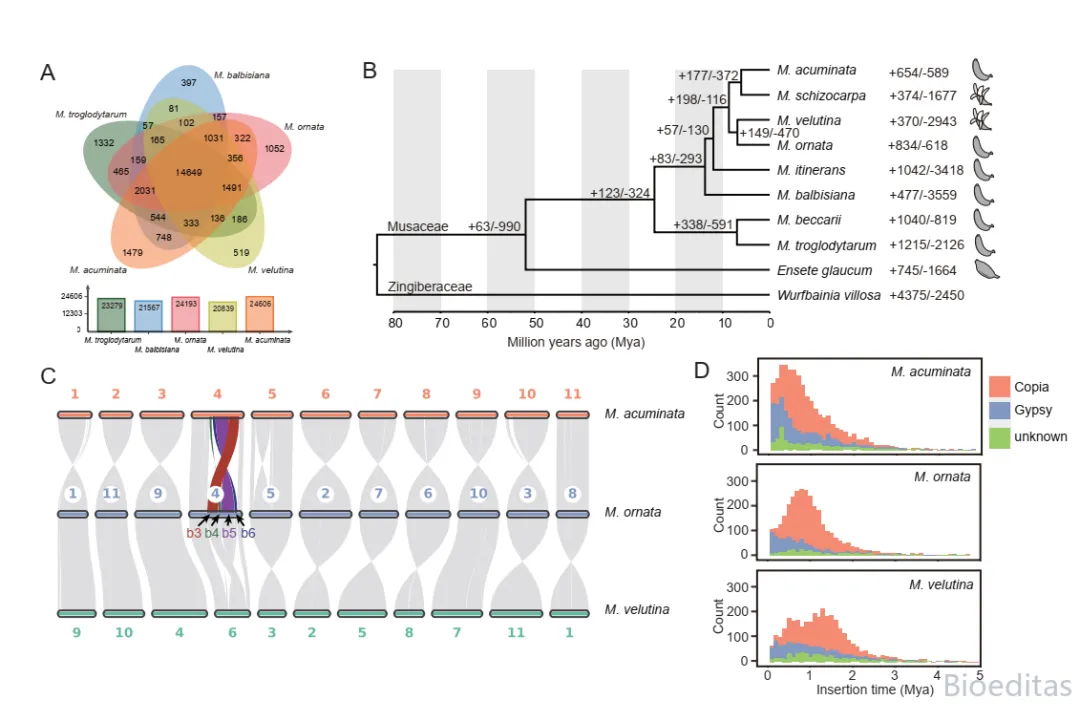
▲Mo、Mv与其他物种基因组的基因家族比较分析
同源染色体结构图显示,Mo、Mv和小果野蕉的大部分同源染色体结构相对保守,但与Mv和小果野蕉相比,Mo的chr04出现了倒位和易位。为了确保这些结构变异不是由错误组装造成的,研究人员通过将Hi-C读数映射到Mo基因组来分析周围区域的Hi-C信号,证实了这些变异的存在。
根据复制模式被分为全基因组复制(WGD)、转置重复(TRD)、串联重复(TD)、近端重复(PD)和分散重复(DD),Mo基因中分别包含12720、1542、983、2146和47164个基因对,Mv中分别包含8530、1355、941、1449和4033的基因对。Ks分布和基因组共线图显示出1:1的共线模式,意味着Mo和Mv至少经历了两次WGD事件。结果表明,两种植物具有相似的Ka/Ks分布模式。
选择正选择的基因进行GO分析,结果表明,Mo和Mv主要富集于“质体组织”、“叶绿体组织”和“防御反应”等terms,表明两个物种可能经历了相似的选择压力。PSMC轨迹表明,Mo和小果野蕉具有较大的历史有效种群规模,从大约6万年前开始下降;与Mo和小果野蕉相比,Mv的历史有效种群规模相对较小。
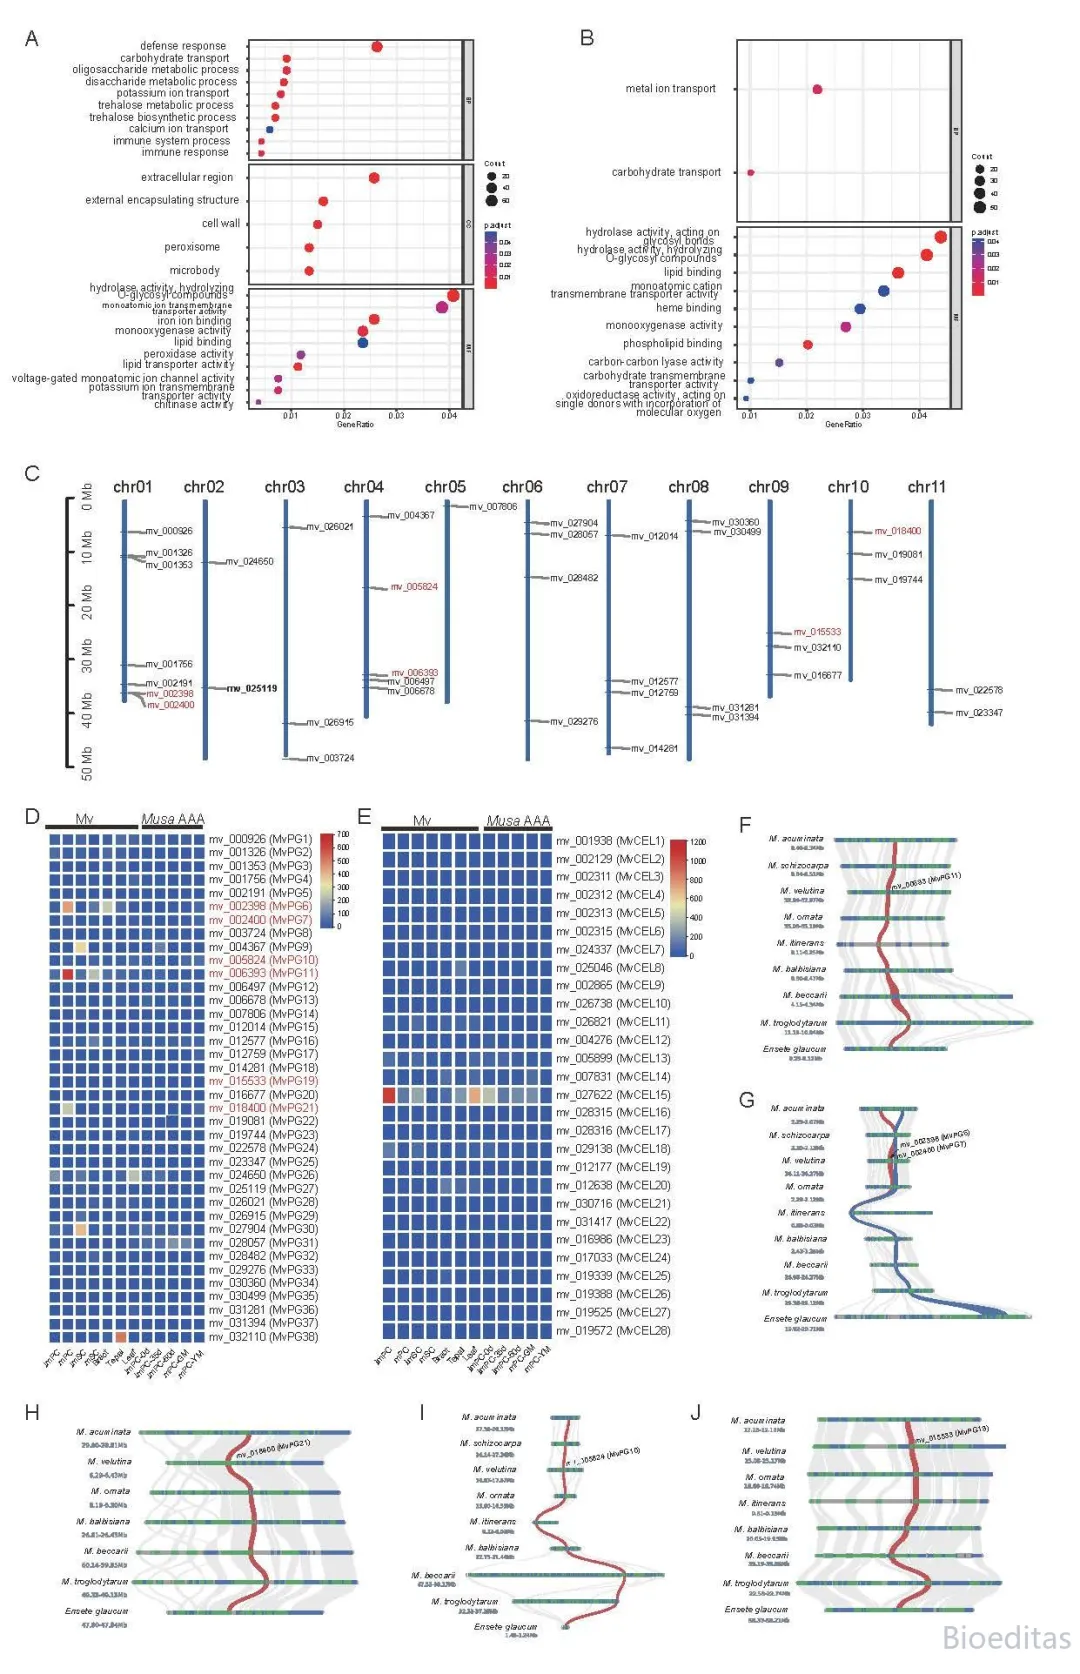
▲A和B:GO在果皮和果肉中分别富集上调基因
C:PG基因在Mv染色体上的位置
D:PG基因在Mv和dwarf香蕉不同组织中的表达水平
E:Mv和dwarf香蕉的CEL基因在不同组织中的表达水平
F-J: PG基因在不同芭蕉科物种中的微共线性显著上调
为了确定哪些基因参与了Mv果皮开裂,研究人员进行了差异表达基因(DEG)分析。在果皮(未成熟vs.成熟,以下简称imPC vs. mPC)和果肉(未成熟vs.成熟,以下简称imSC vs. mSC)中鉴定了Mv在不同发育阶段之间的差异。结果表明,在mPC中,3070个基因上调,6871个基因下调;在mSC中,1,967个基因上调,9,925个基因下调。GO富集分析显示,mPC中表达上调的基因富集在“寡糖代谢过程”、“双糖代谢过程”、“胞外区”、“细胞壁”和“水解酶活性,水解O-糖基化合物”等terms中,而mSC中表达上调基因的富集的GO terms为“水解酶活性,作用于糖基键”和“水解酶活性,水解O- 3糖基化合物”。此外,mPC和mSC中的下调基因在GO的“内源刺激反应”、“核糖体”和“结构分子活性”等terms中富集。
利用HMMER v3.3.2搜索蛋白结构域,检测PG和CEL家族基因,从Mv蛋白序列中筛选出38个PG和28个CEL候选基因,将PG基因根据其染色体位置命名为MvPG1~MvPG38,CEL基因命名为MvCEL1~MvCEL28。DEG分析显示,MvPG11/mv_006393、MvPG6/mv_002398和MvPG21/mv_18400基因在mPC和mSC中的表达量高于Mv的imPC和imSC、苞片、花被片和叶片中的表达量,而PG基因在dwarf香蕉的整个发育阶段都没有高表达;此外,MvPG7/mv_002400、MvPG10/mv_005824和MvPG19/mv_015533从imPC到mPC的表达也显著上调,表达量适度增加。根据GO富集分析,334个MvPG6、MvPG7、MvPG10、MvPG11、MvPG19和MvPG21参与了“水解酶活性,水解o -糖基化合物”和“水解酶活性,作用于糖基键”的分子功能。6个PG 337基因分别位于Mv基因组chr01、chr04、chr09和chr11上,微共线分析表明,它们相邻区域在不同物种间表现出良好的共线性。在这些PG基因中,MvPG6和MvPG7来源于串联重复(TD),提示TD可能参与了Mv的果皮开裂;相比之下,没有发现CEL基因在mPC和mSC中的表达水平高于其他组织。进一步分析发现,PG基因在纯化或负选择情况下,可能在芭蕉科和姜科中具有保守功能。
既往研究表明,PG基因可被AP2/ERF、NAC、MADS-box等转录因子上调,研究人员分析了Mv基因组中的这些TFs,并在PG基因上游区域鉴定了潜在的转录因子结合位点(TFBSs),推测AP2/ERF、NAC和MADS-box参与PG基因的调控。
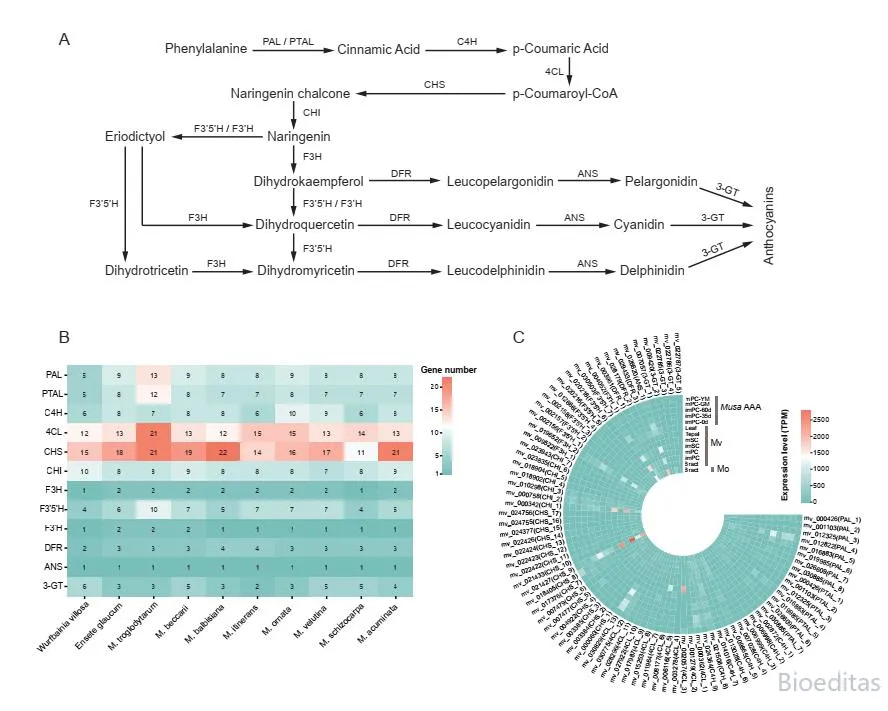
▲A:花青素生物合成途径
B:10种植物花青素生物合成途径中酶编码基因的数量
C:Mo和Mv苞片中酶编码基因的表达水平
研究人员探索了花青素合成途径及其上游苯丙素和类黄酮的生物合成途径,从功能注释中检索了每个步骤中编码酶的基因数量,Mo和Mv的C4H基因数分别为10个和9个,略高于其他物种。Mo和Mv的其他结构基因数与其他芭蕉科物种和阳春砂的结构基因数相似。研究发现,花青素在未成熟果实中的积累速率可能大于成熟果实,这与以往的研究结果一致。此外,ANS_1、F3′5′h_7、F3H_2、CHS_9和4CL_13在Mo和Mv花青素合成相关基因中的表达量普遍高于其他花青素合成相关基因,表明这5个基因可能在花青素着色中起重要作用,但这些基因是如何影响果皮颜色的,还需要进一步的研究。

