
经典案例 | 人参T2T参考基因组揭示皂苷生物合成进化机制
近期,中国农业科学院深圳农业基因组研究所在Horticulture Research上发表了研究成果,组装了人参T2T参考基因组,探索了人生基因组的系统发育和进化分析以及亚基因组之间基因的非对称丢失和偏倚表达,并发现了与人参皂苷合成相关的基因簇。
文章题目
Telomere-to-telomere reference genome for Panax ginseng highlights the evolution of saponin biosynthesis
第一作者:Yiting Song
通讯作者:Wei Li
通讯单位:中国农业科学院深圳农业基因组研究所
杂志:Horticulture Research
影响因子:8.7/Q1
文章链接:
https://doi.org/10.1093/hr/uhae107
研究背景
人参(Panax ginseng)是最重要的药用植物之一,主要生长在中国、韩国、俄罗斯和日本等东北亚地区,北美也有少量种植。据中国古籍《神农本草经》记载,人参的多年生根作为传统药物和功能性食品饮料已有数千年的历史,具有增强体质和免疫功能的作用。人参在野外采集的历史非常悠久,栽培始于约500年前,此后开始育种,并普遍形成栽培品种。
由于人参生长周期长、基因组多倍体、表型不稳定,人参育种仍处于初级阶段,种质在农业应用中不稳定。参考基因组为功能基因、进化和育种提供了信息,但只有少数药用植物的基因组被测序并组装成高质量的基因组。之前的研究获得了质量较好的人参基因组,但仍有一些空白尚未填补。与其他草药一样,药用人参具有复杂代谢物,其中三萜皂苷(人参皂苷)是最重要的类型。人参中可能有一百多种人参皂苷,但绝大多数人参皂苷的合成途径尚不清楚。
技术方案
HiFi➕Illumina➕ONT➕Hi-C综合测序
系统发育分析
比较基因组分析
基因表达与功能分析
研究意义
研究构建了异源四倍体人参T2T参考基因组,并对其多倍体化、亚基因组显性与天然产物人参皂苷生物合成的关系进行了探讨,结构变异的鉴定为人参亚基因组在进化分化过程中发生的动态变化提供了有价值的见解,参考基因组的生成也为人参进化、功能基因和药用植物育种研究提供了更坚实的研究基础。
人参基因组的组装与注释
我们的人参基因组是通过多个测序平台获得的数据进行组装的,利用HiFi、ONT测序、Illumina和Hi-C等综合技术对人生材料进行测序,然后使用TGS-GapCloser进行初始补隙,剩余的补隙采用基于图的补隙(GBGF)进行填补,共补隙286个。最终组装的基因组由24个contigs组成,contigs N50为147.37 Mb;组装的基因组大小为3.45 Gb,GC含量为34.71%,比人参v1.0版本大145倍;BUSCO评估基因组完整性为99.3%。
使用quarTeT41和T2Tools进行端粒和着丝粒预测,结果显示总共有48个端粒和24个着丝粒,除传统端粒序列外,人参基因组还有一个特殊的端粒序列(AAATTTT)n,位于1号染色体(Chr01)上。参考基因组的转座元件(TEs)注释显示,人参基因组中重复序列占83.17%,以LTR最多(74.93%),LTR组装指数(LAI)估计为8.71,比上一版本有所提高。人参基因组的注释结合了ab initio预测、同源性搜索和RNA-seq 数据。最终注释得到了77,266个蛋白编码基因, BUSCO评估完整度为98.4%,也高于上一版本的完整度。
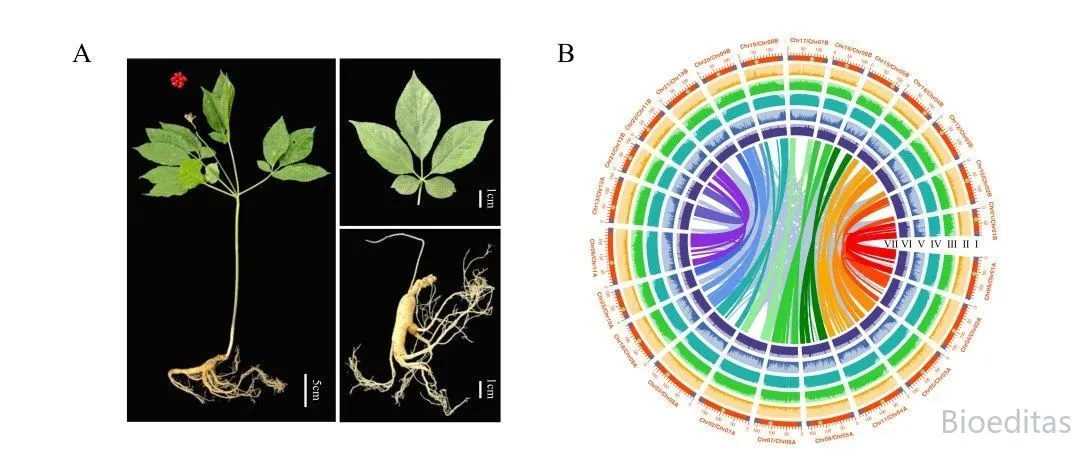
▲人参形态和基因组特征
系统发育与进化
鉴于人参是一种异源四倍体植物,研究人员采用基于13 K-mer的聚类方法,将人参染色体分为两个亚基因组。亚基因组A和B的大小分别为1.94 Gb和1.51 Gb,分别注释了40,550和36,716个基因。估算了两个亚基因组的亚基因组特异性LTR-RTs插入时间,发现与B亚基因组相比,A亚基因组的插入时间更早。
为了研究人参及其亚基因组的进化历史,构建了两棵不同的系统发育树,第一颗包括刺五加(Eleutherococcus senticosus)、楤木(Aralia elata)、屏边三七(P. stipuleanatus)、野三七(P. vietnamensis var. fuscidiscus)、三七(P. notoginseng)、西洋参(P. quinquefolius)、竹节参(P. japonicus)、人参(P. ginseng)等五加科植物,以及葡萄(Vitis vinifera)、莴苣(Lactuca sativa)和胡萝卜(Daucus carota)。结果表明,人参与竹节参的亲缘关系最密切,相隔约674万年。为了进一步追溯人参四倍体的起源,排除了人参属(西洋参和竹节参)中的四倍体,构建了一棵包含两个人参亚基因组和8个物种的进化树。发现人参亚基因组B与野三七的亲缘关系最密切,分化时间约为498万年;亚基因组A在约607万年前与野三七、三七和亚基因组B的共同祖先分离。
亚基因组A有3380个扩张基因家族和5358个收缩基因家族,而亚基因组B有2344个扩张基因家族和5971个收缩基因家族。对亚基因组A和B进行了KEGG富集分析,结果表明,亚基因组A和B的扩张基因家族与倍半萜和三萜的生物合成有关。此外,亚基因组A扩增的基因家族也与细胞色素P450相关,这表明亚基因组A和B基因家族的特异性扩增富集了三萜皂苷产物。
为了研究人参进化过程中发生的全基因组重复(WGD)事件,分析了人参两个亚基因组中同源基因之间Ks的分布,亚基因组A和亚基因组B在0.35-0.38和1.37-1.48之间出现了两个明显的峰值,表明这两个人参亚基因组共享了两个全基因组的复制事件。具体地说,这些事件分别包括核心真双子叶植物共享的γ-WGT和谱系特异性重复pg-β,与之前的报道一致。亚基因组A和B之间同源基因的Ks分布在0.03左右出现特异性峰值,但在亚基因组A或亚基因组B中均未出现峰值,这意味着两个亚基因组之间存在差异,估计分化时间约为607万年。

▲人参与其他物种的比较基因组分析
对同源染色体进行了全面的共线性分析,揭示了三种不同的共线性模式:首先,两个亚基因组对应的染色体(Chr11A和Chr11B、Chr08A和Chr08B)之间存在明显的共线性,表明它们在进化史上从一个共同的祖先分化而来,具有相对完整的染色体结构;其二,在亚基因组中发现了明显共线性,如Chr11B和Chr08B、Chr11A和Chr08A,这意味着两个亚基因组都经历了WGD事件;此外,通过点图分析,发现Chr10B与Chr04A和Chr10A共变,而Chr12B与Chr10A和Chr12A共变,表明染色体重排发生在亚基因组内,表明人参亚基因组的进化轨迹不同。对同源染色体进行了亚基因组间的比较分析,发现了大量的结构变异,这可能导致亚基因组A和B之间观察到的染色体长度差异。
亚基因组A和B经历了
不对称的基因丢失和基因表达偏倚
研究人员对亚基因组A和B的基因组成、表达模式和遗传多样性进行了比较分析。作为基因功能的一个重要指标,在特定亚基因组中,具有特定蛋白结构域的基因数量会随着基因的丢失而减少。在位于24条染色体上的77,266个基因中,69,242个基因(89.62%)含有4,788个Pfam结构域。这表明,与各自亚基因组中的基因总数相比,两个亚基因组中与该Pfam结构域相关的基因数量差异显著。分别有 3.15%(151/4,788)和2.90%(139/4,788)的Pfam结构域特异性地出现在A和B亚基因组中,这突显了基因功能的差异。此外,在两个亚基因组中,屏边三七保留的同源基因数量存在显著差异,这进一步证明了基因丢失发生在亚基因组分化之后。
研究了与屏边三七同源的人参基因的表达谱,根据RNA测序数据将基因分为三类:高表达、低表达和中等表达。观察到子基因组A和子基因组B的同源基因百分比在表达量居中的组别中没有表现出差异;而在低表达组中,B亚基因组同源基因的百分比低于A亚基因组同源基因的百分比;相反,在高表达组中,B亚基因组同源基因的百分比更高。因此,亚基因组A和B的基因表达可能存在显著差异。
此外,采用配对t检验来评估每个亚基因组中同源基因的表达水平,发现在亚基因组A和B中存在基因的偏倚表达。对每个亚基因组中高表达基因进行了功能富集分析,结果表明,它们大多富集于不同的途径,并且同源基因对中观察到的差异表达可能不是随机的。
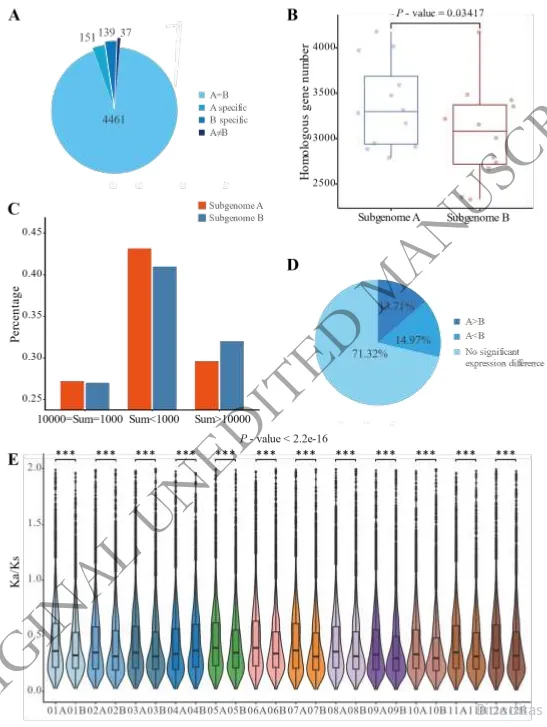
▲人参基因组亚基因组显性分析
杂交在进化过程中起着至关重要的作用,而研究杂交后两个亚基因组之间不同的选择压力是必要的。为此,研究人员对A和B亚基因组的12对染色体的Ka/Ks值进行了比较分析,发现所有染色体的Ka/Ks值都低于1,表明两个亚基因组都经历了纯化选择,且在其余染色体上,B亚基因组一般比A亚基因组经历了更严格的纯化选择,只有Chr 04除外。
不同类型的基因复制促进了
人参三萜皂苷生物合成基因的发展
研究人员在亚基因组A中发现了37,186个重复基因,在亚基因组B中发现了33,235个重复基因,并将其分为五类:分散重复(DSD)基因(A中占37.82%,B中占33.34%)、WGD基因(A中占29.95%,B中占33.90%)、转置重复(TRD)基因(A中占24.25%,B中占24.13%)、串联重复(TD)基因(A 中占3.93%,B中占4.68%)和近端重复(PD)基因(A中占4.05%,B中占3.96%)。在重复基因组中比较了两个亚基因组的Ks值和Ka/Ks值,发现两者基本一致。在比较不同的重复模式时发现,DSD、TD和PD基因的Ks值比其他类型的基因要小,这表明DSD、TD和PD基因是相对较新的重复。此外,PD基因表现出更高的Ka/Ks比率,表明它们经历了更宽松的纯化选择。
研究人员对不同类型的基因重复进行了GO和KEGG分析,富集结果在亚基因组A和B之间发现了一些差异。首先,亚基因组A的GO富集结果表明,PD和TD在萜烯、黄酮类化合物和糖基转移酶活性等多种代谢物的生物合成过程中富集,TRD主要富集于多糖代谢过程,而WGD富集于黄酮类生物合成过程;其次,从亚基因组B的GO富集结果来看,PD和TD在次生代谢物生物合成过程、类黄酮生物合成过程中富集,TD在萜类生物合成过程中富集,PD在糖基转移酶活性中富集,TRD主要富集在糖基转移酶活性和多糖代谢过程中。
从亚基因组A和B的KEGG富集结果来看,新形成的DSD、PD和TD富集于倍半萜类和三萜类生物合成,PD和TD富集于细胞色素P450。总之,这些发现表明基因复制丰富了人参重要代谢产物的生物合成基因。新近形成的TD和PD在植物次生代谢物的产生,特别是三萜皂苷的生物合成中起着关键作用。还进一步探讨了TD和PD在三萜皂苷合成过程中基因扩增的作用,分析了该通路中相对下游的OSC、CYP450和UGT基因,所得结果进一步支持了人参中三萜皂苷生物合成的提供是由进化过程中的基因复制驱动的这一假设。
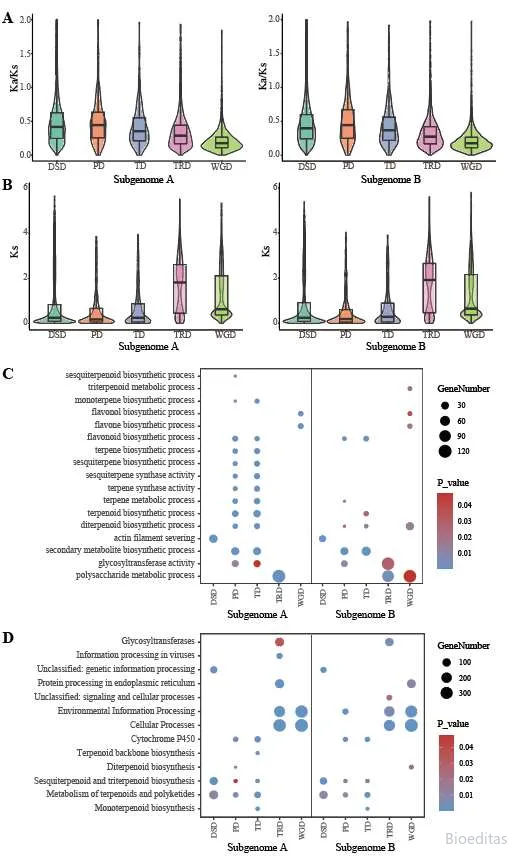
▲基因复制和进化
人参皂苷的生物合成途径
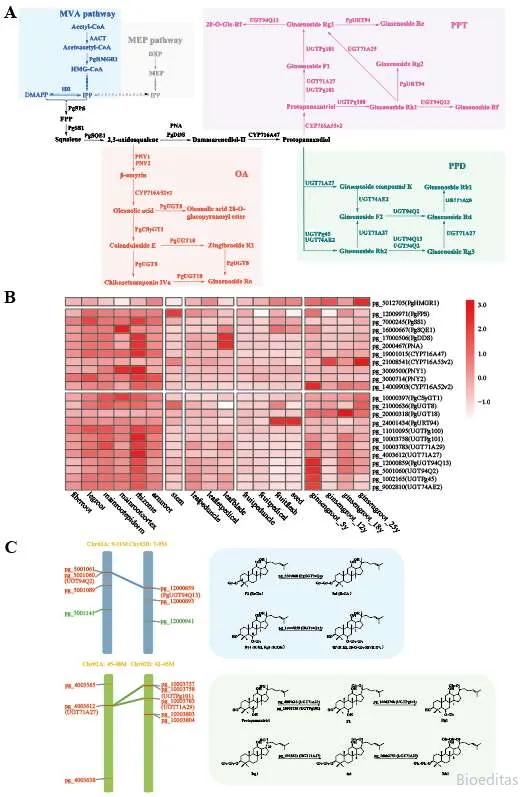
参与人参皂苷生物合成的催化步骤有20多个,关键酶包括鲨烯合酶(SS)和2,3-氧化鲨烯环化酶(OSC),以及细胞色素p450(CYP450)、糖基转移酶(UGT)等。通过基因功能注释和blastp 分析,有效鉴定了人参基因组中直接参与人参皂苷生物合成途径的23个关键酶基因,记录了基因功能并描述了它们各自的催化步骤,分析了它们在14个人参组织和4个人参根中的表达模式,发现P450和UGT基因大多在根中,尤其是根茎中高表达。
人参皂苷的生物合成酶在不同亚基因组之间也存在差异,在亚基因组的共线区域发现了几个同源基因,分别位于该途径的不同步骤。位于Chr3A上的 Pg_5501060(UGT94Q2)和位于Chr3B上的 pg_12000859(UGT94Q13)是亚基因组的同源基因。然而,Pg_5501060(UGT94Q2)负责将F2在3-Glc糖基化为3-Glc-Glc,在PPD部分产生 Rd47,而pg_12000859(UGT94Q13)则将Rh1和Rg1在6-Glc糖基化为6-Glc-Glc,在PPT部分产生Rf和20-O-Glc-Rf。此外,Chr02A上的Pg_4003612(UGT71A27)在Chr02B上有两个相应的基因:pg_10002758(UGTPg101)和pg_10002783(UGT71A29),它们也具有不同的功能。这三种酶都能够将葡萄糖基团转化为20-C,而pg_10002758(UGTPg101)还具有向6-C添加葡萄糖的功能,pg_10002783(UGT71A29)具有将另一种葡萄糖转化为20-O-Glc的功能。
在人参中共发现28个OSC基因、273个UGT基因和550个CYP450基因。此外,通过对OSC、UGT和CYP450基因的染色体定位,在人参中鉴定出13个位于端粒附近的三萜皂苷合成基因簇。尽管酶基因的拷贝数在亚基因组之间有所不同,但其中12个簇对称分布在两个亚基因组上。
▲人参三萜皂苷生物合成途径的代谢途径和热图

