
经典案例 | 基因组组装与重测序揭示木油桐进化、种群选择和性别鉴定机制
近期,中南林业科技大学教育部非木材林木培育与保护重点实验室在Horticulture Research上发表了研究成果,报道了染色体水平雄性木油桐参考基因组,根据全基因组重测序数据、选择性扫描和遗传多样性分析,确定了几个与抗逆性和类黄酮化合物合成相关的基因,还通过全基因组关联研究发现了一个与性别相关的InDel。
文章题目
Genome assembly and resequencing shed light on evolution, population selection, and sex identification in Vernicia montana
第一作者:Wenying Li
通讯作者:Lin Zhang
通讯单位:中南林业科技大学教育部非木材林木培育与保护重点实验室
杂志:Horticulture Research
影响因子:8.7/Q1
文章链接:
https://doi.org/10.1093/hr/uhae141
研究背景
木油桐和油桐是大戟科油桐属属最具代表性的两个树种,通常被称为“桐油树”或“桐树”,由于其花色、香气和丰富花序表型等与花有关的特征,它们在利用种子生产高价值桐油方面具有重要经济价值,在园林绿化方面也极具观赏价值。桐油由大约80%的α-桐酸组成,由于含有三个共轭双键,极易氧化,因此被广泛应用于如保护性防水饰面、电绝缘材料等各种工业领域。与油桐相比,木油桐是一种雌雄异株植物,雌树的果实产量更高,雄树则因花序大而具有更高的观赏价值。
木油桐是一种隐性雌雄异株树种,在自然种群中的性别分离比为 1:1。然而,由于目前缺乏有效的性别鉴定基因组学方法,因此很难确定不开花木油桐的植物性别。木油桐通常需要3到4年才能完全成熟,因此,在育种计划中需要开发一种准确、快速、有效的方法来确定其幼苗的性别。近期油桐基因组的报道为基因组进化和油脂生物合成提供了重要见解,但由于两个物种之间存在显著差异,因此并不适用于木油桐。
技术方案
PacBio➕Hi-C➕全长转录本组装
比较基因组学分析
全基因组重测序数据➕选择性扫描➕遗传多样性分析
全基因组关联研究
研究意义
文章揭示了木油桐的基因组进化、种群选择和性别鉴定机制,为解开性别决定系统和确定其性别决定区域提供了新的见解,将有助于重要农艺性状的开发和基因组辅助育种的研究。
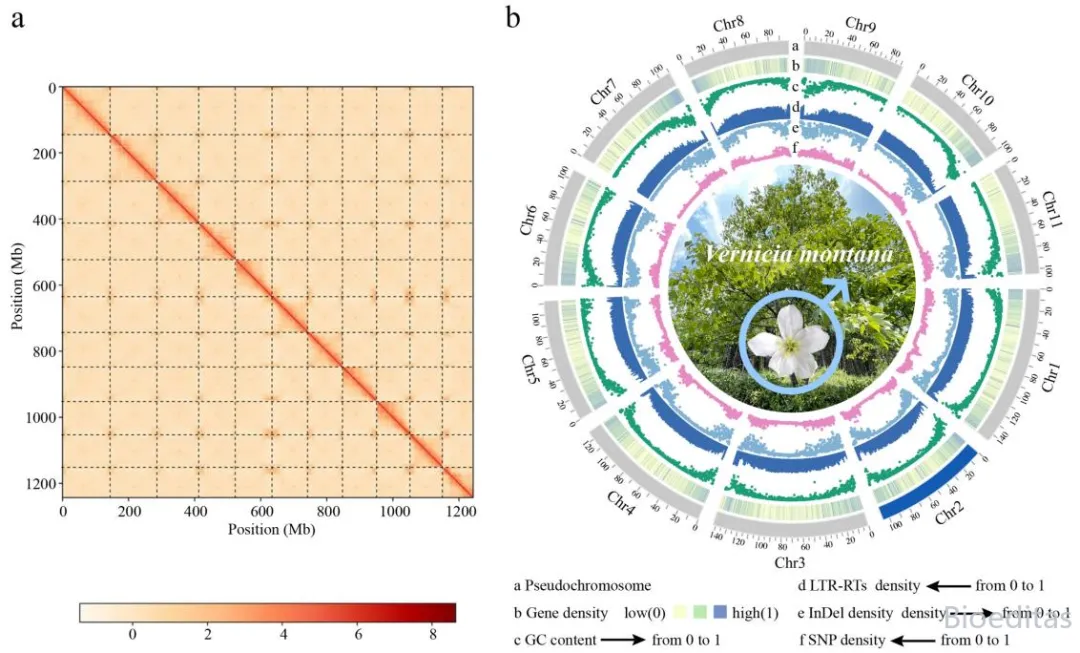
▲木油桐基因组组装
1
基因组组装与注释
研究人员利用PacBio、Hi-C和全场转录本组装综合方法对雄性木油桐进行了测序,最终获得的基因组大小为1.29 137 Gb, contig N50为3.69 Mb;评估基因组组装的完整性为97.2%;锚定在11条伪染色体上,占总数的97.28%;结合de novo、同源和基于RNA预测,共预测了28,781个蛋白质编码基因,占木油桐基因组BUSCO完整性的94.3%;共鉴定出了1.01 Gb的转座元件(TE),占整个基因组的78.58%。
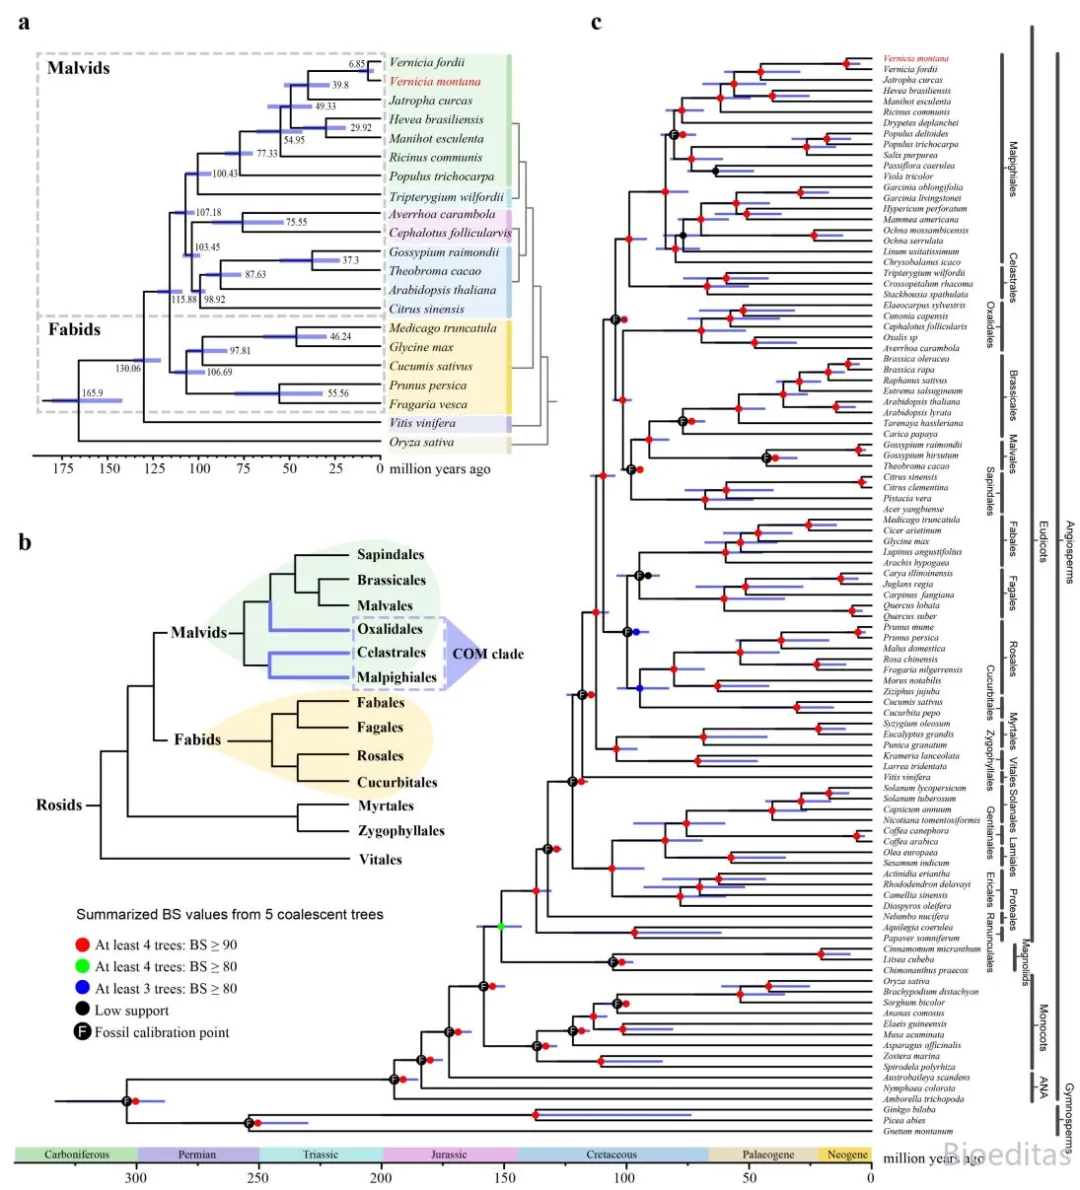
▲被子植物的系统发育关系
2
木油桐与COM进化支的系统发育位置
根据21个物种的141个直向单拷贝核基因的氨基酸序列和核苷酸序列,构建了4棵系统发育树,以研究木油桐和Celastrales-Oxalidales-Malpighiales(COM)支系的进化。根据核苷酸序列推断的串联树被选作21个物种的系统发生关系,从而推测大戟科物种的分化时间约为54.95Mya。系统进化分析证实,木油桐与油桐的亲缘关系最为密切,而油桐与它们的共同祖先的分化时间约为6.85Mya,即新近纪时期。所有拓扑结构都认为,COM支系的物种属于锦葵分支而非豆分支,且CM分支与酢浆草目和其他锦葵分支平行。
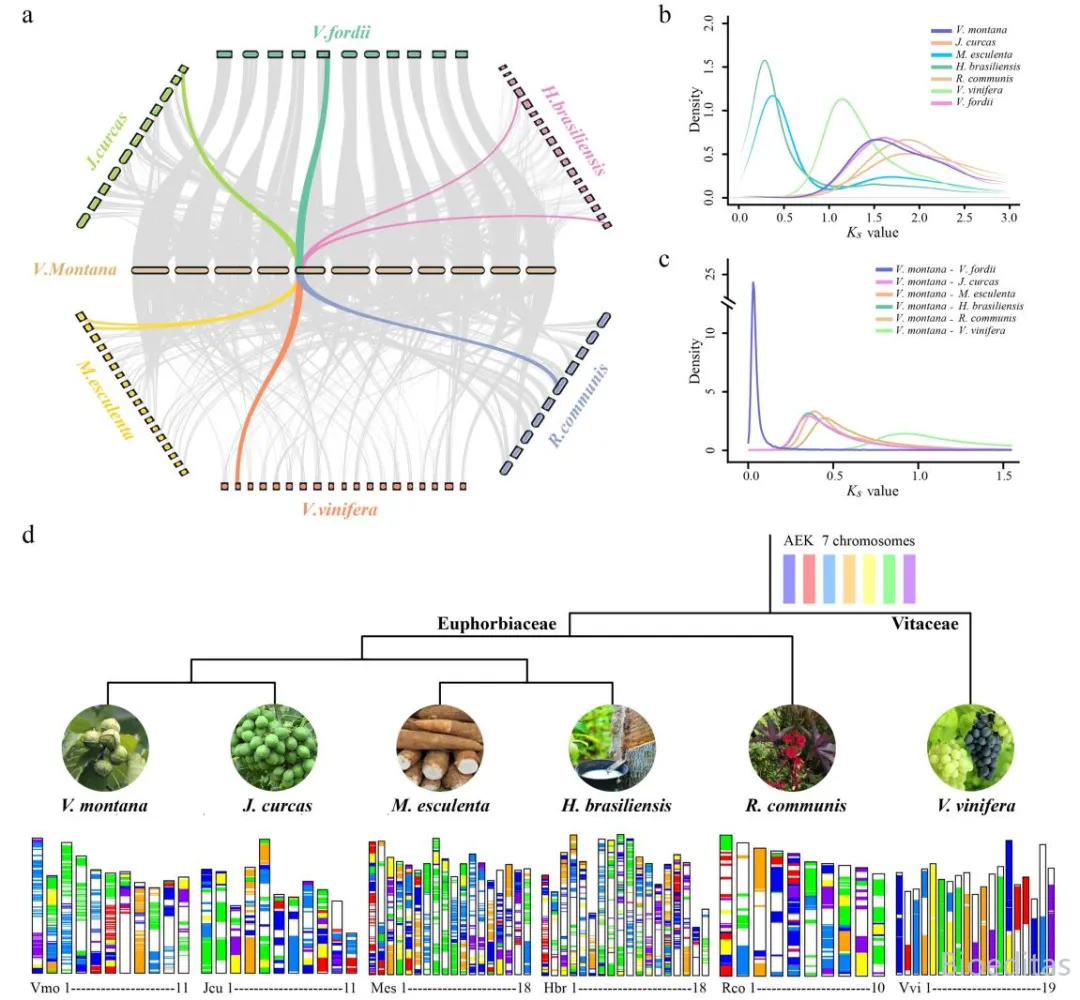
▲大戟科植物的比较基因组学分析
3
核心裸子植物γ三倍化事件后的基因组进化
木油桐基因组与其他大戟科植物和葡萄基因组的同源比对结果表明,前者在经历了古老的三倍化之后并没有进行任何新的全基因组复制(WGD)。通过自交系同源分析,Ks 值的分布在木薯(Manihot esculenta)和橡胶树(Hevea brasiliensis)中显示出另一个明显的近期峰值,但木油桐(约1.513)和其他物种仅显示出一个高于1的峰值,证实它仅经历了一次WGD事件。根据木油桐与其他物种之间Ks的分布,峰值均小于1,表明木油桐的WGD事件比其与其他物种的分化要早。因此,这一WGD事件是所有裸子植物共有的古老的γ事件(WGT),木油桐的WGT可追溯到约116.4Mya。
葡萄一直被用来发现开花植物的祖先性状和基因组特征,为了探索古代三倍体化事件后的染色体进化,研究人员使用前γ祖先裸子植物核型(AEK)对木油桐、其他四种大戟科植物和葡萄进行了同源染色体分析。与葡萄不同,大戟科植物在进化过程中经历了大量的染色体重排事件,并保留了许多与AEK的短同源区块。在大戟科植物中,木油桐、麻风树和蓖麻(VJR)只经历了共同的WGT事件,而木薯和橡胶树(MH)则分别经历了一次较新的古四倍体事件。与MH相比,VJR与AEK的结构保留程度更高。大戟科染色体进化模型表明,多倍体化诱导的基因组结构变异重塑了染色体结构,自共同的古多倍体祖先以来产生了多种多样的modern染色体。
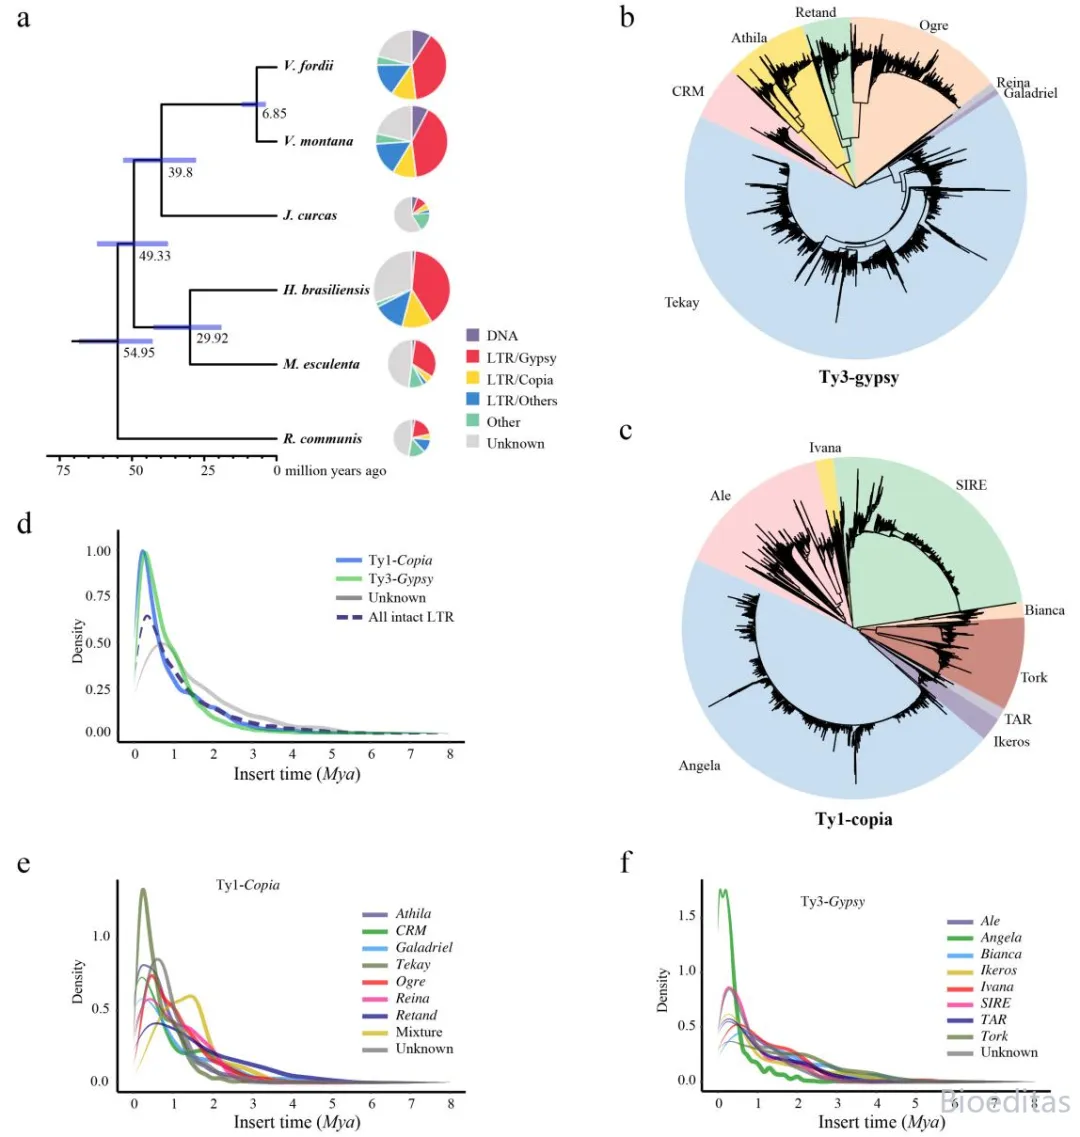
▲木油桐基因组RT家族的进化
4
LTR-RTs爆发推动了木油桐基因组的扩增
研究人员分析了LTR-RTs的进化及其对木油桐基因组增长的潜在贡献,木油桐基因组富含RTs(855.8 Mb; 66.54%)。LTR-RT(60.96%Ty1-Copia、16.10%Ty3-Gypsy、22.94%未知)尤其丰富,占基因组大小(853.2 Mb)的66.34%,与油桐(65.81%)和橡胶树基因(65.88%)几乎相同,并且远高于麻风树(18.39%)、木薯(39.72%)和蓖麻(35.48%)基因组。这些植物的基因组大小与LTR-RTs的比例成正比,而TEs主要由少量拷贝数极高的LTR-RTs家族决定,如Ty3-Gypsy LTR-RTs。Ty3-Gypsy LTR-RTs家族在木油桐基因组中占主导地位(520.16 Mb;40.44%),其丰度几乎是Ty1-Copia(137.33 Mb;10.68%)或未知 LTR-RTs(195.73 Mb;15.22%)的3.8倍或2.7倍。
共鉴定出15,998个完整的LTR-RT,占木油桐基因组的11.57%(148.9 Mb)。完整LTR-RT被分为4753个科,其中拷贝数超过10个的前137个科占完整LTR-RT的67.2%,占基因组的7.78%。构建的完整Ty1-Copia和Ty3-Gypsy LTR-RT系统发育树显示,Ty1-Copia LTR-RT以Angela(41.77%)系为主,其次是SIRE(25%)系;而Ty3-Gypsy LTR-RT以Tekay(51.35%)系为主,其次是Ogre(22.39%)系。
分析完整LTR-RT发现,木油桐经历了由Ty1-Copia、Ty3-Gypsy和其他类LTR-RT扩增引起的多个RT暴发。从总体上看,LTR-RTs的增殖集中在木油桐基因组的最后1Mya。所有完整LTR-RT的平均插入时间为0.3 Mya,Ty1-Copia(约0.23Mya)和 Ty3-Gypsy(约0.28Mya)之间的插入时间非常相似。在Ty1-Copia的世系中,Angela世系的两个插入时间分别为0.06Mya和0.20Mya,而其他世系的插入时间则在0.29~0.67Mya之间,Ty3-Gypsy的大多数世系的插入时间在0.27~0.61Mya之间。
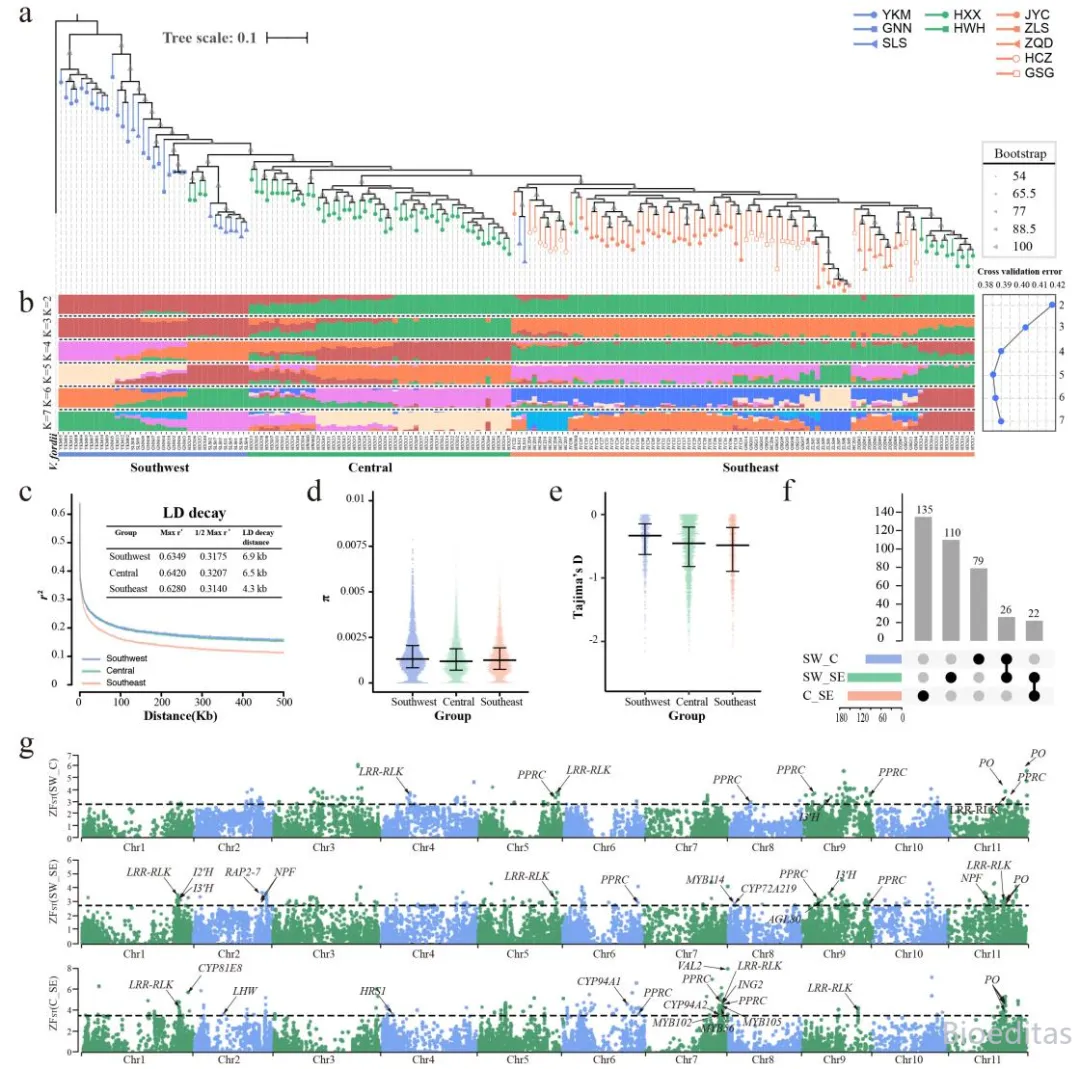
▲种群结构、遗传多样性分析及基因鉴定
5
木油桐种群结构
研究了178个木油桐产地的10个不同生态种群之间的关系和差异,初步鉴定了38,359,821个SNPs和4,266,202个InDels,经过严格筛选后共获得10,166,492个高质量SNPs供进一步分析。以油桐为外群,根据观察到的单拷贝基因的全基因组遗传变异,探讨了178个accessions之间的系统发生关系。邻接系统发育树显示,178个accessions主要分为3个地理亚群,包括:(I)西南亚群(37个),主要来自四川、云南和广西;(II)华中亚群(51个),主要来自湖南和湖北;(III)东南亚群(90个),主要来自江西、浙江和广东。主成分分析显示了相似的种群亲缘关系。
利用最大似然法估计了每个种群的祖先种群分层,祖先种群大小为K=2~7。在K=2时,Ce亚群和SE亚群表现出一致的遗传构成,但在K=3时发生分化,表明SE亚群起源于Ce亚群。在这些亚群中,最佳祖先比例(K=5)显示出更复杂的遗传构成。遗传结构表现出明显的区域相似性:来自相似生态区域的加入物可能具有相似的基因型,这可能是自然选择和人工选择的结果。Ce亚群主要由HXX转录物组成,与西南亚群和东南亚群的边界相对清晰。所有五种类型的基因簇都能在HXX转录物中找到,分别归入SW 亚群(1种)、Ce亚群(5种)和SE亚群(4 种)。
根据单拷贝基因区域内的SNPs,还分析了木油桐种群中的连锁不平衡(LD)、核苷酸多样性(π)比率和Tajima’s D值:LD以不同的速度衰减到半极大值:SE>Ce>SW;SE亚群的LD衰减率相对较高,这可能反映了其较高的群体遗传多样性;然而,与 Ce和SE亚群相比,SW亚群的平均π比率更高。负Tajima’s D值呈上升趋势(SE<Ce<SW),Ce亚群的负值窗口数远远高于SW亚群和SE亚群(约2倍),这表明Ce亚群和SE亚群的正选择作用强于SW亚群。
为了通过迁移、杂交和驯化过程中的选择性扫描确定可靠的群体特异性修正基因,研究人员采用了一种结合FST和π比率的综合策略,通过不同亚群之间的配对比较,共确定了195个推定的选择性扫描,覆盖木油桐基因组的29.36 Mb,包括372个基因:SW vs. Ce、SW vs. SE和Ce vs. SE。基于GO的功能富集显示,323个这些基因主要富集于磷酸酶活性、激酶活性和DNA去磷酸化过程。这些假定的选择性横扫基因大多是群体特异性基因,在 SW、Ce和SE之间没有发现共同的选择性扫描基因,在Ce和SE之间也没有发现特异性的选择性扫描基因。适应对生物的生存和繁殖至关重要。在不同的配对比较中,有几个抗逆性基因和类黄酮合成基因相互重叠,位于假定选择性扫描区域内, 如 CYP450家族基因CYP94A1/CYP81E8/CYP726A20、LRR-RLK家族成员、NRT1/PTR家族蛋白NPF2.2/2.3/2.6/7.1,以及I2'H和I3'H。
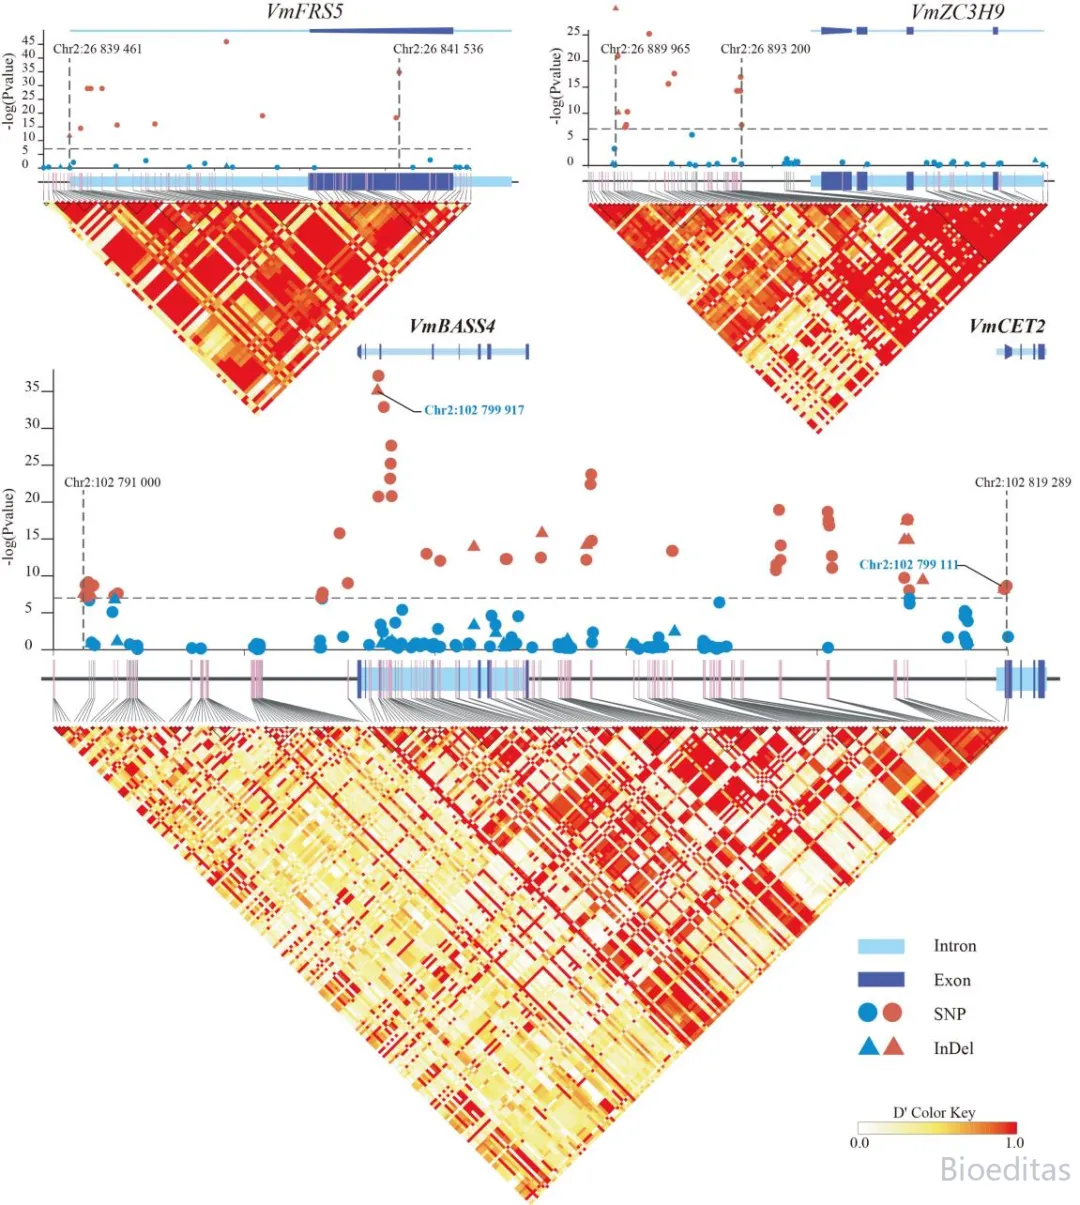
▲全基因组关联研究鉴定的性别相关等位基因的连锁不平衡(LD)定位
6
性别性状的全基因组关联分析
根据祖先种群分层评估结果,选取了种群分层相对不同的25个雄性个体和25个雌性个体进行GWAS研究,利用SNPs和InDels分别鉴定了这50个个体的多态性与木油桐性状的关联,共鉴定出了66个和18个明显与性别相关的SNPs和InDels,这些SNPs和InDels全部位于Chr 2上。这些性别相关多态性位点密集分布在 2 号染色体的三个小区域,分别覆盖 2.076、3.291和28.29 kb区域,位于四个预测的蛋白编码基因的启动子或基因区域,包括FRS5、ZC3H9、BASS4和CET2。
为了探索这些基因的表达谱,研究使用了雌花和雄花不同发育阶段的转录组学数据,VmFRS5和VmBASS4在花中的表达水平极低;VmZC3H9在雌花和雄花的所有发育阶段都有表达;在苹果、猕猴桃和柑橘中,VmCET2的同源物负责控制花序结构和延长茎尖分生组织的分期,而VmZC3H9仅在雄花的早期花发育阶段表达,这表明它可能对雄花的早期发育具有特殊功能。位于Chr 2:102,819,111的一个重要性别相关SNP导致约64% 的雌性发生GAT到ATT的错义突变,该突变出现在VmCET2的第四个外显子中。
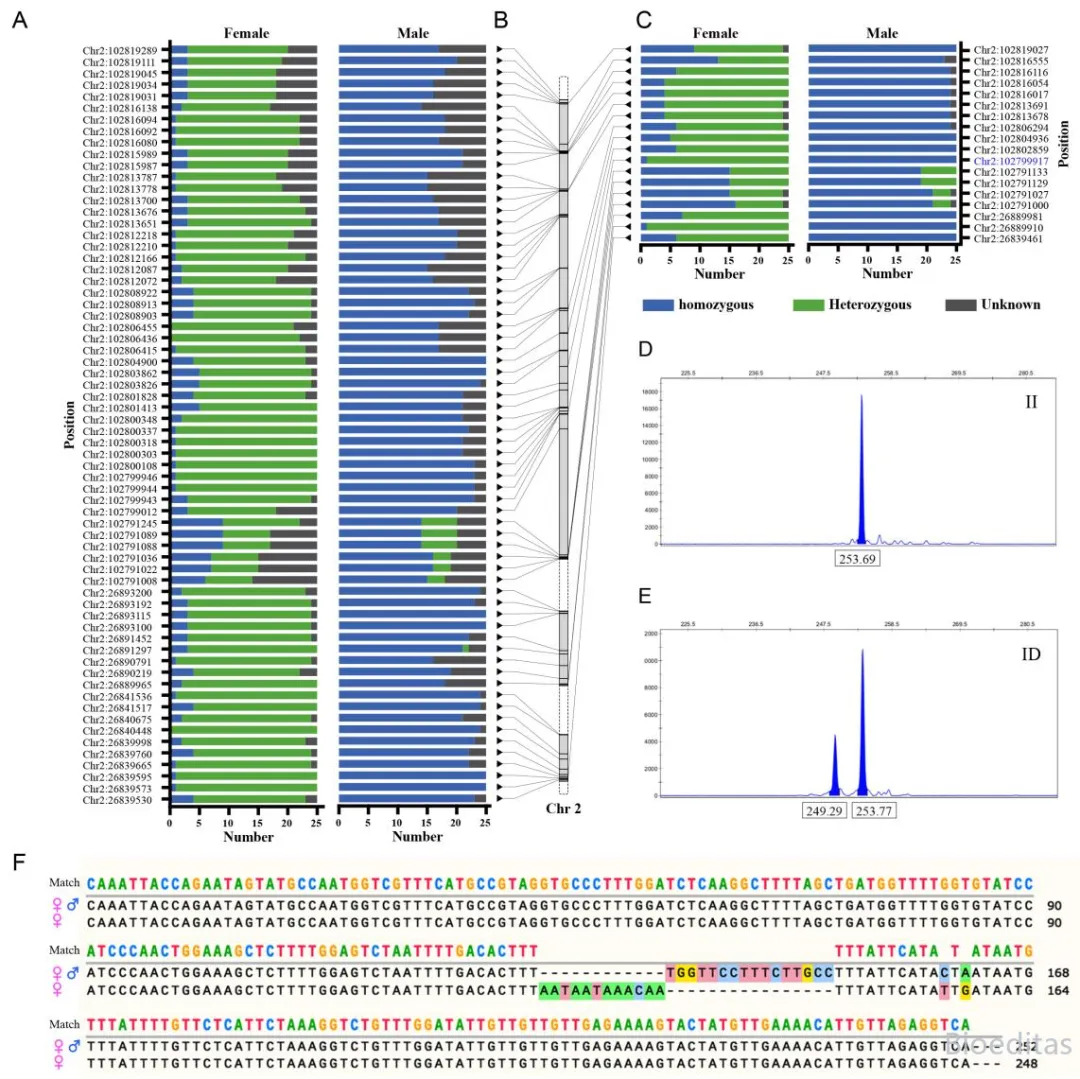
▲用于鉴定木油桐性别的InDel多态性分子标记
在所有被选中的男性个体中,59个(共66个)显著性别相关的SNPs和13个(共16个)显著性别相关的InDels中为纯合,其余与性别明显相关的基因位点在大多数雄性个体中也显示为纯合基因。至于雌性中与性别明显相关的多态性位点,虽然半数以上雌性中大多数 SNP(64/66)和InDels(13/18)的基因型是杂合的,但在所有被选中的雌性中,66个SNP 中只有3个基因型是杂合的,而16个InDels中并未出现。简而言之,与性别相关的SNP和InDels在雄性中几乎是纯合的,而在雌性中则往往是杂合的。
为了开发有效标记来鉴定木油桐的性别,引物设计只确定了位于Chr 2:102,799,917-102,799,933 bp的一个与性别显著相关的InDel。在所有25个被选中的雄性个体中,该InDel均为同卵双生,而在24个雌性个体中则为异卵双生。检测InDel标记在雌性和雄性个体中的片段长度多态性,结果表明,可以通过片段长度多态性来鉴定木油桐的性别。每个雄性产物仅在253 bp处出现一个峰,而大多数雌性产物在249 bp和253 bp处出现两个峰,多态性片段的序列通过Sanger测序得到了进一步验证。最后,研究人员证实该InDel为推定的性连锁InDel。有趣的是,根据推测的性连锁InDel,GATK4和CE平台都将实地观察标记为雌性GNN01和SLS01的基因型指定为纯合(基因型雄性)。此外,404个推定的性连锁InDel位于VmBASS4的第二个内含子上。

