
经典案例 | 野生马铃薯单倍型T2T参考基因组研究为其耐冻性机制提供新见解
近期,云南大学生命科学中心云南省细胞代谢与疾病重点实验室在Plant Communications上发表了研究成果,生成了首个单倍型的T2T野生马铃薯参考基因组(CM1.0),还发现MAP激酶和ROS清除系统有助于提高其抗冻能力。

文章题目
The haplotype-resolved T2T genome assembly of the wild potato species Solanum commersonii provides molecular insights into its freezing tolerance
第一作者:Yang Feng, Jie Zhou
通讯作者:Cheng Peng, Guangtao Zhu
通讯单位:云南大学生命科学中心云南省细胞代谢与疾病重点实验室
杂志:Plant Communications
影响因子:10.5/Q1
文章链接:
https://doi.org/10.1016/j.xplc.2024.100980
研究背景
马铃薯是最重要的块茎作物,在确保世界粮食安全方面发挥着重要作用。栽培种(DM,一种加倍单倍体类型)的基因组于2011年首次发布,随后不断更新成为最受欢迎的参考文献,最近又发布了四倍体C88的高质量组装。这些研究极大促进了马铃薯研究。栽培马铃薯对冷冻和多种病害敏感,而这些性状可以通过吸收野生种的外来多样性得到改良。野生种Solanum commersonii(CM)对根结线虫、晚疫病和细菌性枯萎病等多种病害具有抗性,尤其是该物种具有极强的耐冻性。现存的Solanum commersonii基因组草案是用短读数组装的,片段化程度较高,与参考基因组相去甚远。
技术方案
PacBio HiFi➕ONT➕Hi-C综合测序
系统发育分析➕比较转录组分析
研究意义
研究结果为描述基因组结构和抗冻性状提供了更坚实的数据支持,为功能基因组学提供了宝贵资源,并将进一步促进马铃薯的遗传改良工作。
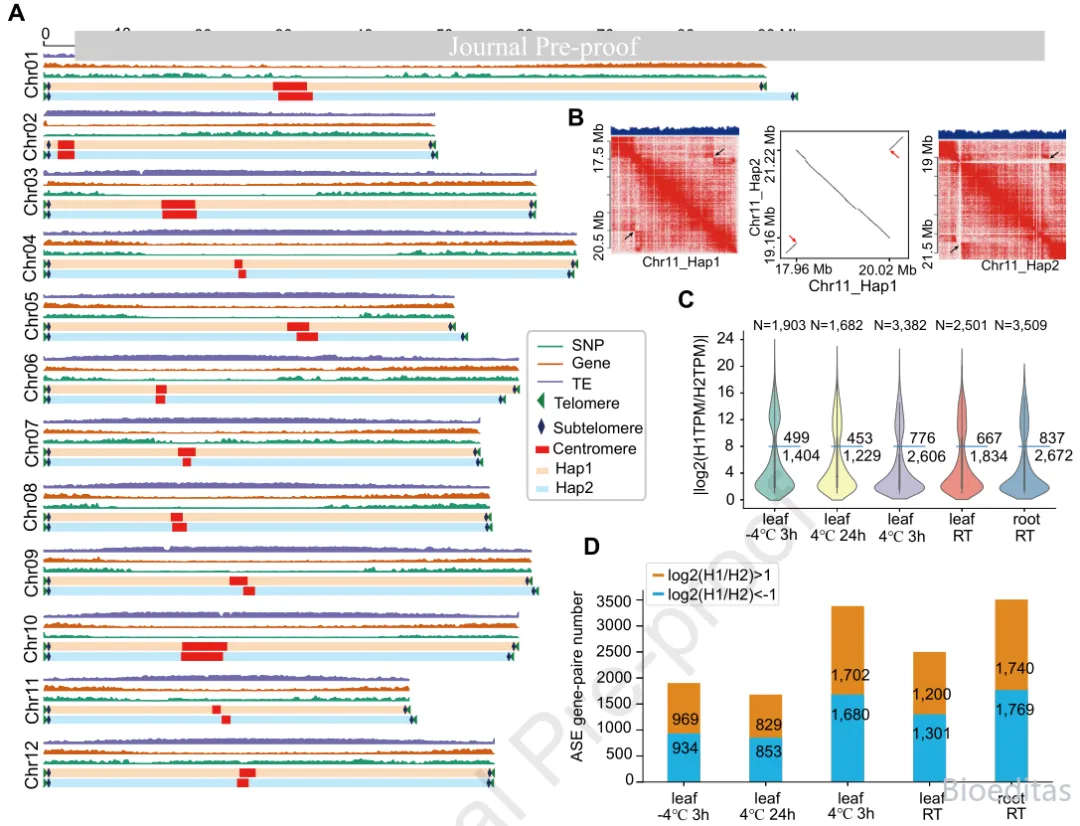
▲(A):Hap1中SNP、基因和TE分布,以及Hap1和Hap2组装体中端粒、亚端粒和着丝粒的分布
(B):两个单倍型之间的一个大反转INV470,通过Hi-C互作和ONT reads验证
(C):等位基因特异性表达(ASE)基因在不同组织和处理中的表达模式
(D):表现出单倍型偏好的等位基因对数量,橙色和蓝色列分别表示Hap1和Hap2优势ASE
利用PacBio HiFi、ONT和Hi-C综合技术组装了野生马铃薯CM1.0的单倍型分辨T2T基因组,获得的Hap1和Hap2的总大小分别为707.40 Mb和712.10 Mb,contig N50分别为48.90 Mb和55.24 Mb;CM1.0的杂合度为0.85%;两种单倍型的BUSCO评估均大于98.40%,高映射率大于99.70%;两个单倍型的LTR LAI值分别为12.70和12.54,与T2T DM8.1的LAI值(12.29)基本相似;基因组整体R/S-AQI分别为97.23%和98.91%。所有评估值都表明 CM1.0的组装质量较高。
共发现了47个端粒,不同染色体上的端粒长度各不相同,最长(92.50 Kb)和最短(1.90 Kb)的端粒分别位于Hap2 中Chr02 的5'端和3'端。所有染色体的亚端粒结构也得到了鉴定,重复序列包括三种类型的单体:CL14c(181 bp)、CL34c(335 bp)和RN318。前两种类型与DM中报告的序列相似,RN318是一种新类型,仅存在于Chr02的5'端。根据CENH3 ChIP-seq数据,对所有染色体的着丝粒进行了划分,最长(5.47 Mb)和最短(0.81 Mb)的着丝粒分别位于Chr10和Chr04上,着丝粒区域共预测出了19种卫星重复单体,这些单体与DM中的单体不同。
基因组中重复序列占67.27%,其中转座元件(TE)占60.75%;两个单倍型分别注释了49,437和48,963个转录本中的38,805和38,237个蛋白质编码基因;其中,分别有92.85%和93.00%的基因进行了功能注释,高于DM8.1(84.60%);两个单倍型的BUSCO值分别为99.50%和99.40%,连续性和完整性较高,可作为参考基因组使用。
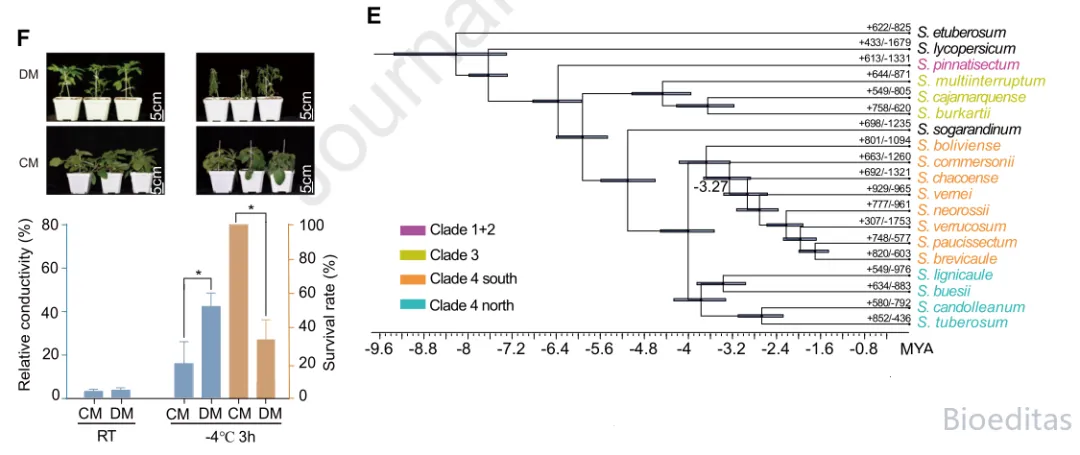
▲(E):野生马铃薯与其他茄属植物基因家族进化的系统发育和进化
(F)冷冻处理(-4°C 3小时)后野生马铃薯(CM)和栽培种(DM)的表型变化(上),以及冷冻处理后CM和DM的传导性和存活率(下)
两个单倍型之间的比较显示,它们拥有414个同源区,总长度为633.60 Mb。同时,共检测到3,102,627个SNPs、247,928个插入(243,850个小插入<50bp)、220,406个缺失(216,090个小插入<50bp)、64个倒位、200个易位和16个重复,分别横跨Hap1的3.10、8.14、9.68、40.96、3.11和0.15 Mb。根据等位基因的同源性和相似性,共鉴定出了29,700 对等位基因。利用等位基因变异研究了等位基因的表达模式,共有60,067个基因在叶或根中表达,其中45,169个可归入等位基因。
在每个组织或处理中,出现等位基因特异性表达(ASE)的基因数量不同,但其ASE模式相似。这些等位基因可分为两组,约四分之一(22.90~26.80%)的ASE表现出较高值。此外,单倍型参照ASE基因数量在Hap1和Hap2中也最为相等。研究人员发现,ASE基因的基因区总是比AEE(等位基因等效表达)基因的基因区含有更多SNPs,丰富的等位基因变异可能是导致ASE发生的原因之一。
根据来自茄属19个物种的6819个单拷贝基因构建了系统发育树,茄科植物Petota类群被分为四个支系(支系 1+2、支系3、支系4南部和支系4北部)和单独的野生马铃薯,这与之前的研究结果完全一致。野生马铃薯位于南支系4的基部,在距今327万年前与其他物种分化。进一步的分析表明,663个基因家族和1260个基因家族在野生马铃薯中扩张和收缩,扩增的基因与对细菌的防御反应和器官发育与生长密切相关。
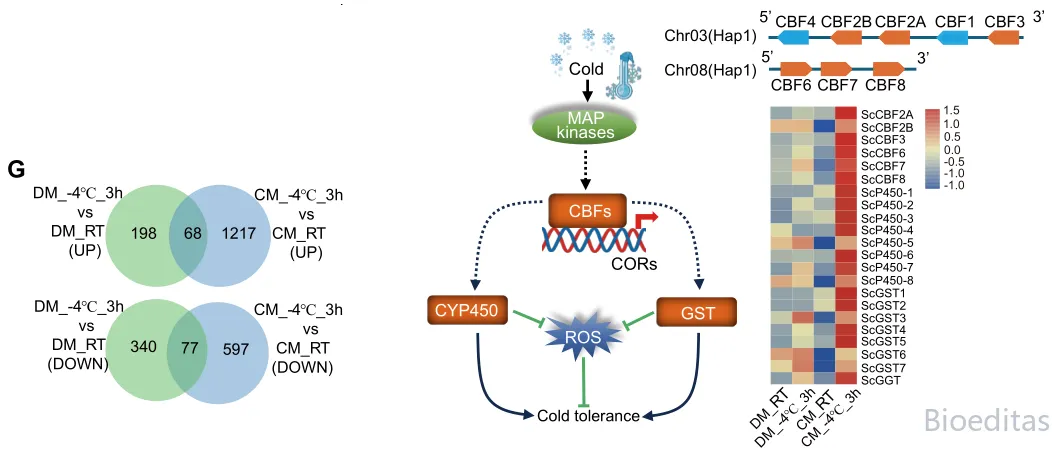
▲(G):两种材料中差异性表达基因维恩图
(H):CM低温触发CBF-COR级联通路示意图
将两种材料(DM和CM)转移到冷冻条件下,两种基因型在冷冻处理后表现出明显的表型和生理差异。转录组学分析表明,DM和CM中分别有683个(266个上调,417个下调)和1,959个(1285个上调,674个下调)基因对冷冻有显著响应。共有1,217个基因在CM中发生了特异性上调,这些基因富集在已知的冷反应途径中,如MAPK(丝裂原活化蛋白激酶)途径、谷胱甘肽代谢和细胞色素P450过程。MAP激酶在温度感知中发挥着重要作用,它们可以通过连续的磷酸化事件将信号从膜传递到下游转录因子。研究人员发现有47个属于MAP激酶的基因在CM中被快速激活,它们会影响C-repeat结合因子(CBF)的表达。有两个集群(Chr03和Chr08)中的六个CBFs表达明显上调,它们可以启动一系列冷调节基因(COR)。
详细分析发现,hap2中约0.6 kb的缺失导致CBF2B的缺失,而CBF的其他等位基因并没有表现出明显的差异表达。有趣的是,谷胱甘肽代谢和细胞色素 P450这两种途径被显著激活。在前者中,冷冻处理后,CM中的所有7个GST(谷胱甘肽 S-转移酶)基因和1个GGT(γ-谷氨酰转移酶)基因都比DM中的基因有更明显的增加。在后一种情况中,除了两个基因几乎没有表达外,8个CYP450基因中有7个在CM中比在DM中出现更明显的上调,12个基因的RT-qPCR结果与RNA-seq分析结果完全一致。这两种途径都能清除外部应激诱导的过量ROS积累。这一分析很好地解释了CM为何具有较强的抗冻能力。

