
经典案例 | 无间隙基因组和多组学分析揭示柑橘果实类黄酮生物合成动态特征
近期,广东省农业科学院果树研究所南亚热带果树生物学与遗传资源利用重点实验室和浙江省山区农业高效绿色生产协同创新中心联合通讯,在Horticulture Research上发表了研究成果,报道了高质量无间隙柑橘基因组,通过多组学分析确定了黄酮类化合物生物合成的关键结构基因、转录因子和代谢产物。
文章题目
The gap-free genome and multi-omics analysis of Citrus reticulata ‘Chachi’ reveal the dynamics of fruit flavonoid biosynthesis
第一作者:Congyi Zhu, Congjun You
通讯作者:Jiwu Zeng, Xuepeng Sun
通讯单位:广东省农业科学院果树研究所南亚热带果树生物学与遗传资源利用重点实验室和浙江省山区农业高效绿色生产协同创新中心联合通讯
杂志:Horticulture Research
影响因子:8.7/Q1
文章链接:
https://doi.org/10.1093/hr/uhae167
研究背景
柑橘主要种植在热带和亚热带地区,是最重要的水果作物之一,虽然大多数柑橘品种的果皮通常作为不可食用的副产品而被丢弃,但主要产自中国广东新会地区栽培变种茶枝柑(CRC,又称“Chachi”)的干果皮因其独特的风味和促进健康的作用而被广泛用于烹饪和中药。《神农本草经》记载,CRC的医学史可追溯到2000多年前的汉代。最新的2020年版《中国药典》在176种不同的处方中列出了CRC,占中成药的10%以上。当代药物研究强调CRC提取物的多种药理作用,包括对胃肠道和呼吸系统的影响,以及表现出抗氧化、抗炎和抗癌活性。
黄酮类化合物和挥发油是CRC的主要生物活性成分,其果皮中复杂的化合物包含超过20094类黄酮代谢物,包括类黄酮苷和多甲氧基黄酮类化合物(PMFs) 。橙皮苷、川陈皮素和橘皮素是CRC中公认的指标化合物,已被列入《中国药典》。黄酮类化合物的组成和分布具有显著的时空变异性,其含量与抗氧化功效之间的关联研究证实,在不同时期收获的CRC具有不同的治疗潜力,这凸显了了解CRC果实发育过程中生物活性成分的生物合成和积累的必要性。尽管最近的研究表明,MYB、C2C2-Dof和Alfin类转录因子可能参与了CRC中黄酮类化合物生物合成的调控,但目前仍缺乏对果实发育过程中黄酮类化合物组成及其调控的全面了解。
技术方案
基因组➕转录组➕代谢组多组学分析
系统发育➕全基因组重复分析
WGCNA分析
研究意义
研究深入揭示了CRC的基因组进化、生物合成过程以及营养和药用特性,基因组组装与果实发育四个主要阶段的转录组学和代谢组学图谱相结合,为CRC果实黄酮的生物合成和营养特性提供了新的见解,研究提供的数据集也将有助于基因功能分析以及未来育种计划中的种质改良。
1
CRC基因组组装、注释与评估
Nanopore和MGI综合技术对茶枝柑CRC进行了测序,最终的组装由16个contigs组成,总大小为312.97 Mb,contig N50大小为32.18 Mb,与K-mer分析确定的估计基因组大小315.6 Mb非常接近;与野生C. reticulata基因组相比,这一序列具有更高连续性;对着丝粒卫星重复序列和端粒重复序列(CCCTAAA /TTTAGGG)的全基因组搜索发现了9条染色体上的着丝粒位置,以及位于2、5和6号染色体两端和1、4、7和9号染色体一端的端粒位置;BUSCO评估基因组完整性为98.4%,LTR组装指数(LAI)得分为24.95,超过了金标准参考基因组的基准值;共线性分析表明,CRC、C. sinensis和C. clementina基因组之间具有高度同源性。
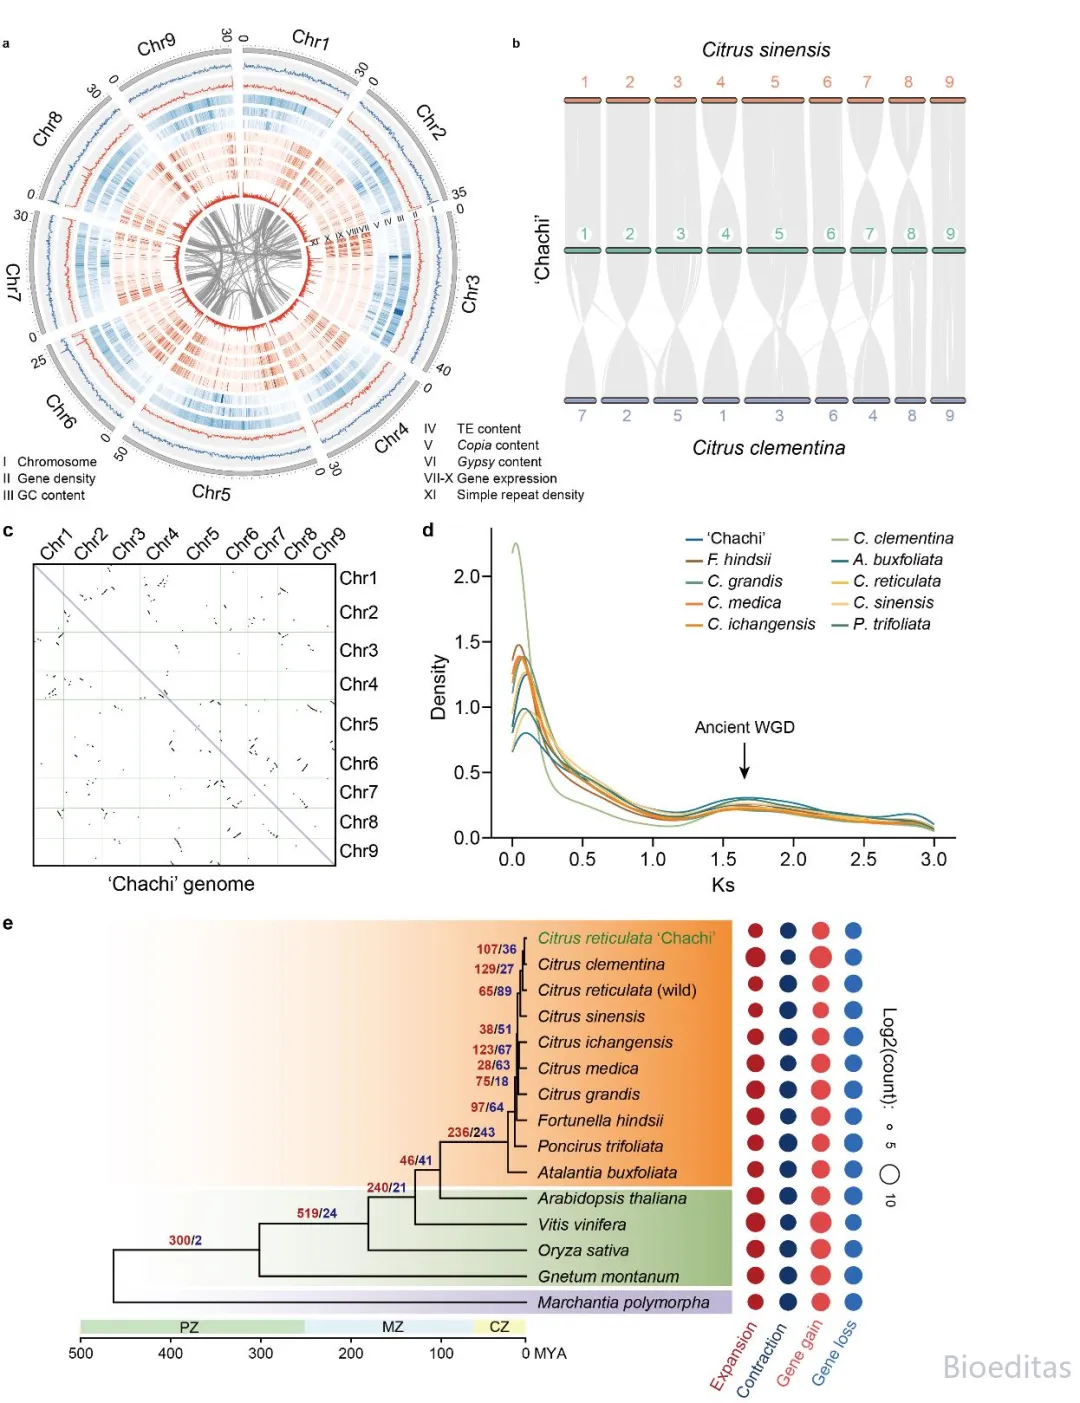
▲CRC和近缘物种的比较基因组学
2
全基因组复制和系统发育进化
为了揭示CRC的进化历史,研究人员分析了该基因组中旁系亲属之间的Ks,并将其与之前研究过的其他柑橘物种的同义替换率进行了比较,发现Ks值在1~2之间有一个明显峰值,所有柑橘基因组的峰值都在1.6左右,这表明在柑橘物种的共同祖先中发生了古老的全基因组复制。
基于411个单拷贝正交群的系统进化分析显示,CRC和另外14种植物与C. clementina关系密切,两者都属于现代栽培柑橘。基因家族进化分析表明,与C. clementina的最低共同祖先相比,CRC基因组中有132个基因家族(包括1,157个基因)显著扩增,其中包括编码UDP-糖基转移酶、莽草酸羟基肉桂酰基转移酶等的基因家族,这些基因是黄酮类化合物生物合成的关键成分。
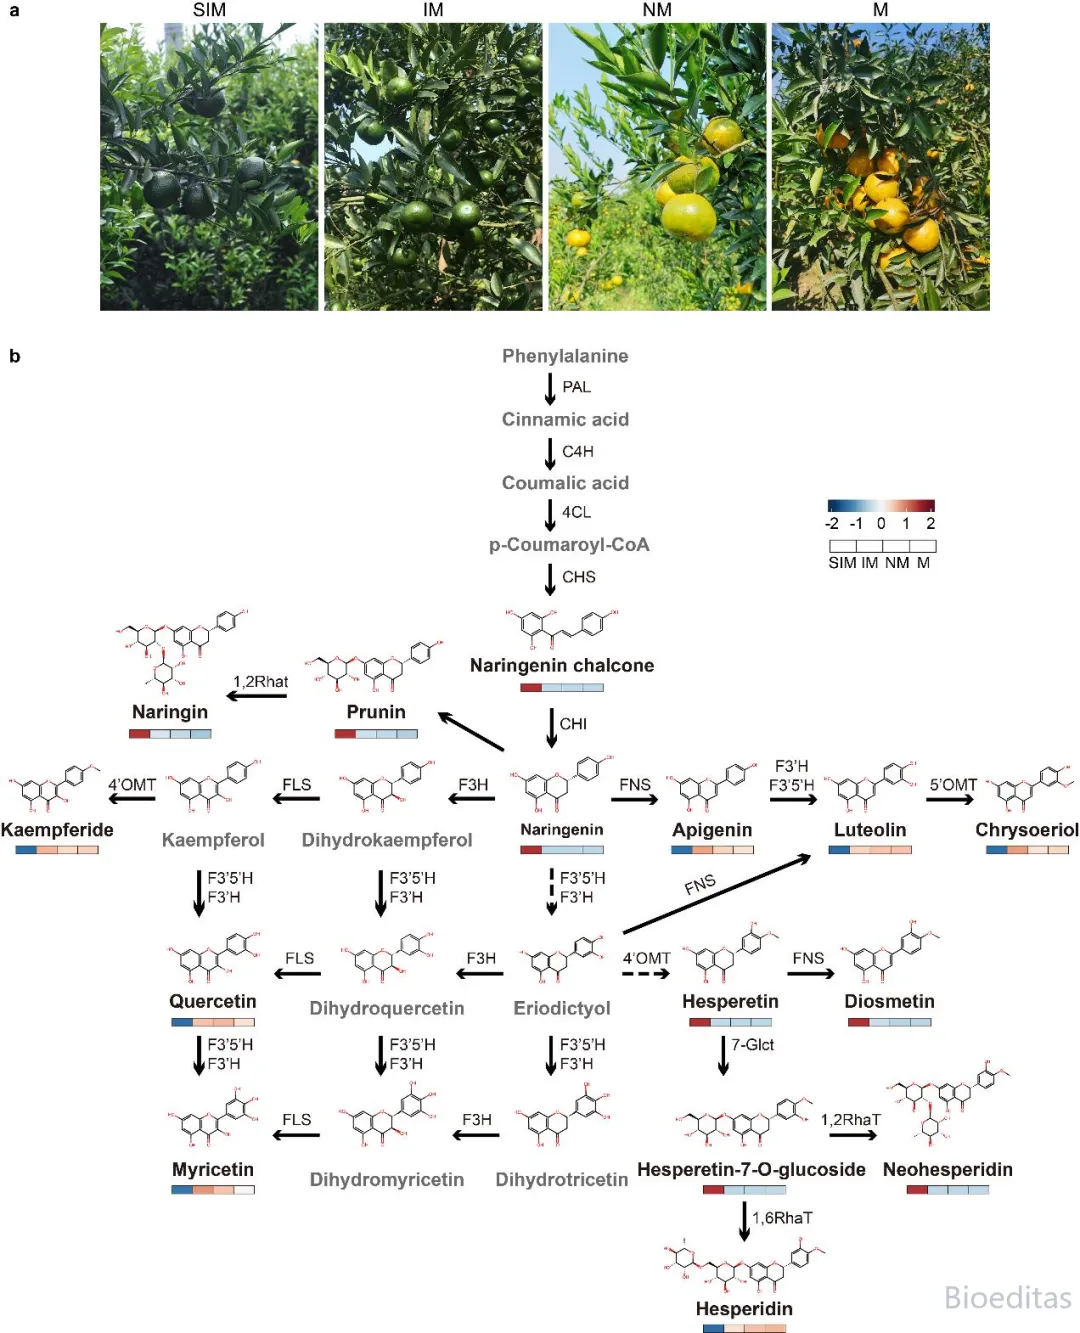
▲CRC果实在四个代表性发育阶段的代谢图谱
3
CRC果实发育过程中类黄酮代谢的动态变化
类黄酮是CRC果皮中的主要活性成分,为了研究这些代谢物是何时以及如何合成和积累的,研究人员对四个不同发育阶段的果皮进行了采样,包括前未成熟期(SIM)、未成熟期(IM)、近成熟期(NM)和成熟期(M)。利用基于UPLC-MS的非靶向代谢组学进行了综合分析,在四个阶段的CRC果皮中发现了491种类黄酮代谢物,其中黄酮类化合物种类最多,有243种(49.49%),其次是黄酮醇类化合物,有115种(23.42%)。黄酮类化合物的代谢图谱在不同生物重复之间具有很高的重现性,但在不同阶段的果实之间具有显著的动态变化。一般来说,大多数类黄酮代谢物(83.3%;n=409)在果实早期发育阶段浓度较高,在果实成熟过程中浓度下降。其中包括类黄酮生物合成途径的关键代谢物,如查耳酮和柚皮素,这两种物质在未成熟的小果实中浓度较高,但在随后的三个阶段则检测不到;还有四种黄烷酮类化合物,在果实发育过程中浓度逐渐降低,降幅从65.49%到98.96%不等。与此相反,该途径的末端产物,包括三种黄酮(芹菜素、木犀草素和金圣草素)和三种黄酮醇(山柰素、槲皮素和杨梅树皮素),则呈现出相反的趋势,并在成熟果实中积累。此外,与SIM果实相比,CRC果实中的主要生物活性化合物橙皮甙的浓度在IM、NM和M果实中分别增加了1.73 倍、1.96倍和2.05倍。
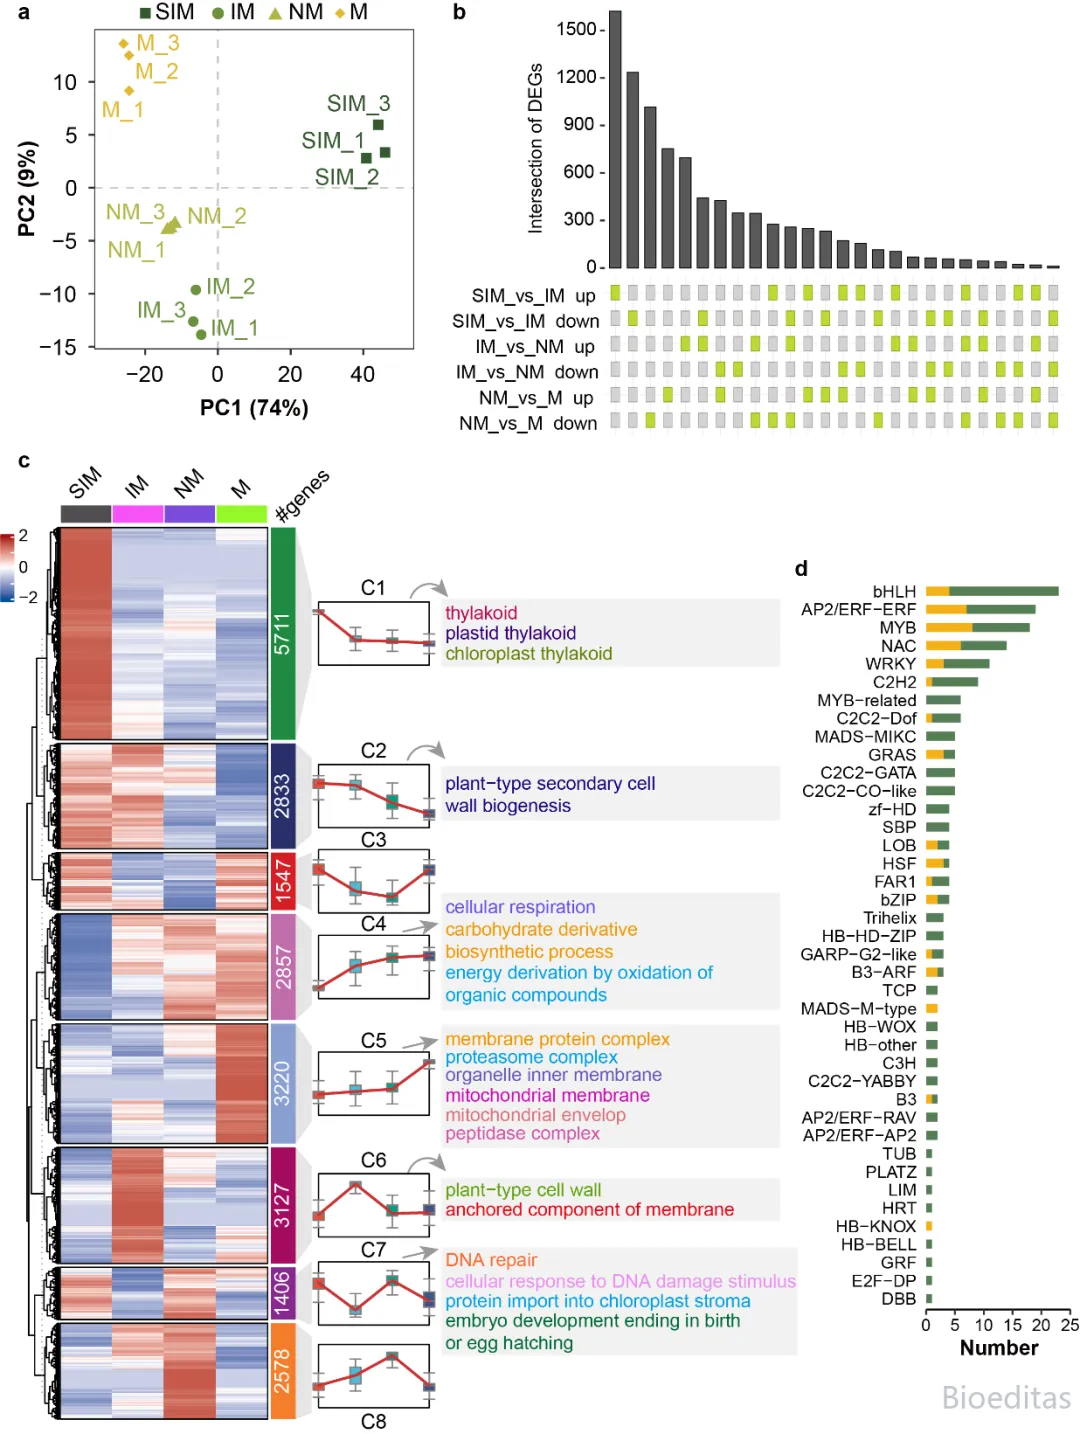
▲CRC果实四个阶段的转录动态
4
类黄酮生物合成的转录调控
研究人员使用与代谢组学分析相同的样本进行了转录组测序,PCA分析以类似于代谢组学分析中观察到的模式分离了样本,表明转录调控主导了CRC果实中的代谢通量。在SIM与IM的比较中发现,有1621个基因上调,1235个基因下调。在随后的阶段,差异表达基因的数量有所减少,在NM与M的对比中,上调基因为754 个,下调基因为1016个;在IM与NM的对比中,上调基因为659 个,下调基因为348个。根据基因表达对样本进行K-means聚类,发现了八个重要的基因组,其中最大的一组(C1)富含与叶绿体功能相关的基因。该组中的基因在SIM果实中的表达水平高于其他果实。相反,与果实发育呈正相关的基因表达组(C4和C5)主要与线粒体功能有关。这些数据与果实成熟伴随着叶绿体分解和呼吸速率增加的事实相一致。此外,有189个DEGs(8.31%)被鉴定为转录因子(TFs),其中大部分被下调(n=141)。
根据与其他物种基因的同源性搜索,在CRC 基因组中发现了21个可能参与黄酮类化合物生物合成的基因,进化分析表明,这21个基因中的大多数都处于纯化选择过程中,而表达分析则揭示了这些基因在果实发育过程中的独特表达模式 。在果实发育的所有四个阶段都检测到了四个推定的苯丙氨酸解氨酶(PAL)基因。在这4个基因中,CP7g002665基因在SIM、IM和M阶段的表达量较高;与M阶段的最高表达量相比,它在NM阶段的表达量显著下降了40.53%;CP6g002191基因的表达趋势与CP7g002665基因相似;CP8g002821基因的表达量明显低于其他三个假定的PAL基因。
在两个推定的植物肉桂酸-4-羟化酶(C4H)基因中,CP1g000830基因的表达量随着果实的发育而增加,在M阶段达到最高表达量。在CRC基因组中发现的两个查尔酮合成酶(CHS)基因(CP2g002894 和CP1g000339)表现出不同的表达模式,CP2g002894在SIM期的表达量最高,在IM期、NM期和M期分别下降了71%、66%和80%。然而,CP1g000339在果实发育过程中呈现出“上升-下降”的趋势,在SIM期表达水平最低,在IM期表达水平最高。在果实发育过程中,4'OMT编码基因(CP9g001415)的表达水平逐渐下降,在SIM阶段表达量最高。另一方面,F3'5'H和F3'H基因的表达量在果实发育过程中呈上升趋势,在SIM期表达量最低。总之,分析揭示了CRC果实发育过程中黄酮类化合物生物合成途径中关键酶的独特表达模式,表明它们在调控黄酮类化合物积累中的潜在作用。
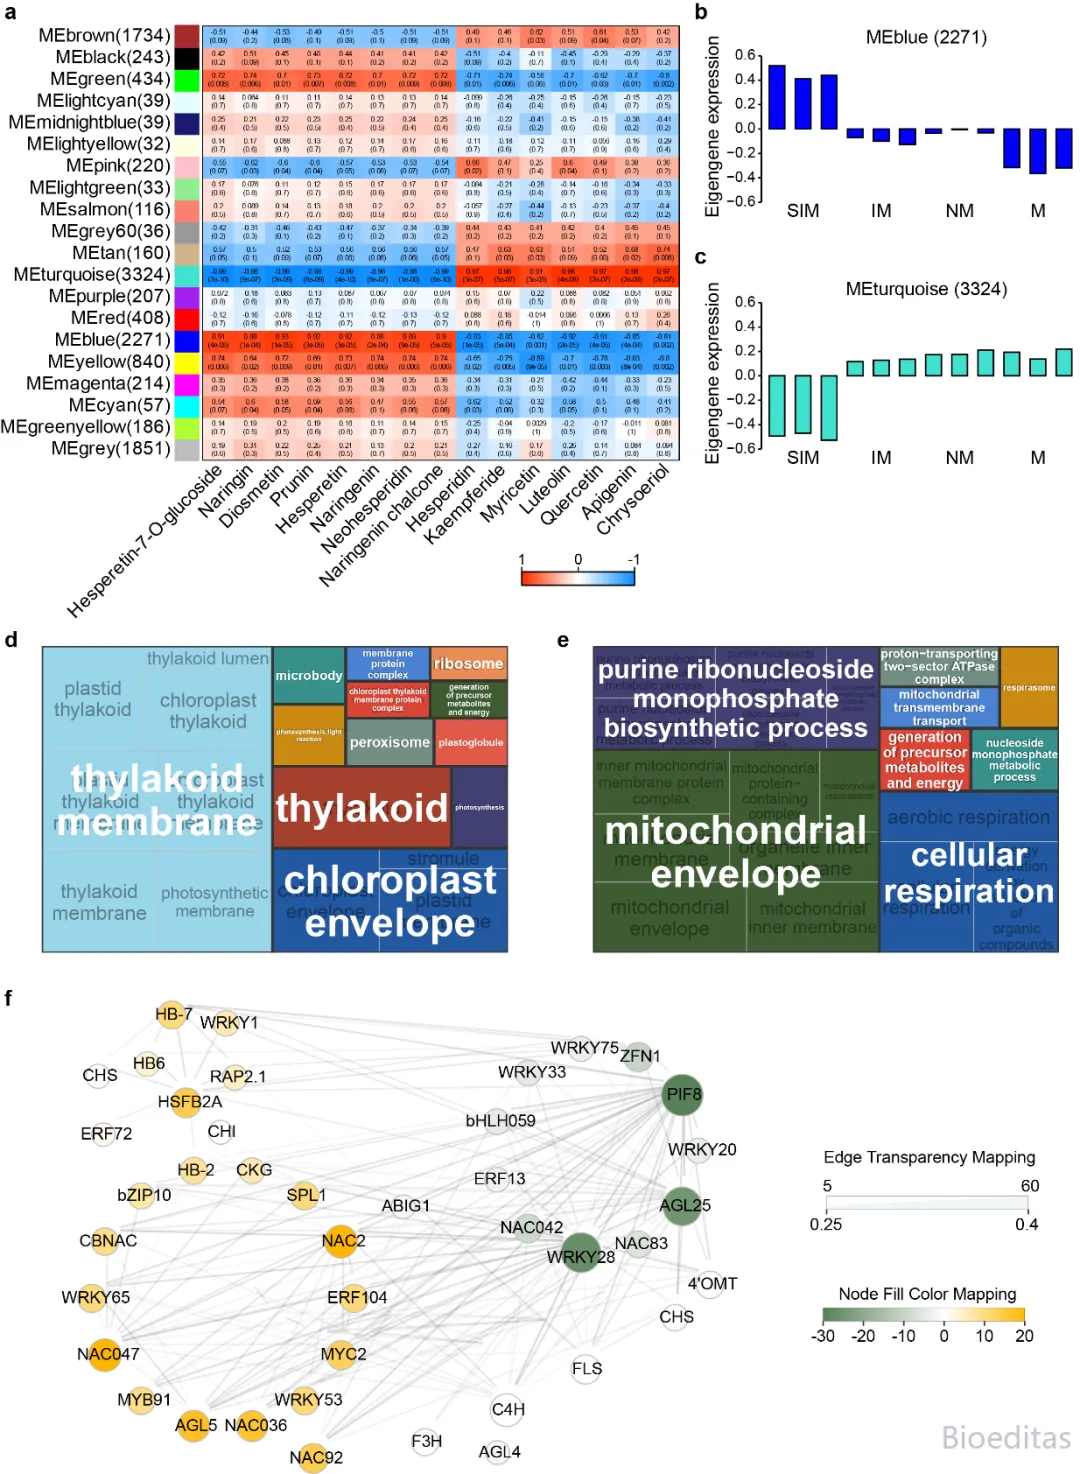
▲CRC转录组的WGCNA分析
5
类黄酮生物合成相关基因模块的鉴定
为了探索CRC果皮中黄酮类化合物合成的基因调控网络,研究人员利用转录组和代谢组数据进行了加权基因共表达网络分析(WGCNA),结果发现了20个不同的共表达模块,每个模块都有独特的颜色,并与类黄酮含量相关。有两个模块基因(ME)与15种黄酮类化合物显著相关。绿松石模块包括3324个基因,与橙皮甙、山柰素、木犀草素、槲皮素、芹菜素和金圣草素呈强正相关;相反,与橙皮素7-O-葡萄糖苷、染料木素、柚皮苷等呈明显负相关。包含2,271个基因的蓝色模块与绿松石模块的相关模式相反,与橙皮素-7-O-葡萄糖苷和染料木素等类黄酮的正相关性最高,而与橙皮甙、山柰素等的负相关性最低。
黄酮类化合物生物合成途径的结构基因,包括CHS、FLS和4'OMT,在蓝色模块的未成熟小阶段高表达,与黄酮类化合物含量的变化一致。GO富集分析将蓝色模块与光合作用和植物发育过程联系起来,而绿松石模块则与细胞呼吸和能量生成有关。转录因子(TFs)是网络不可或缺的组成部分,有399个TFs分布在类黄酮共表达模块中,主要来自NAC、WRKY、bHLH、bZIP等基因家族,在绿松石模块和蓝色模块中的分布几乎相等。蓝色模块中的关键TFs被确定与几种黄酮类化合物正相关,其中PIF8和AGL25显示出强连接性。在绿松石模块中,AGL5和NAC2等TF与特定类黄酮呈强正相关,而来自不同家族的14个TF被鉴定为与类黄酮的生物合成呈负相关。参与类黄酮生物合成的结构基因,如C4H、CHS、CHI、FLS和4'OMT,显示出与多个TFs的共表达,突出了促进类黄酮生物合成的复杂的相互作用网络。这项综合分析强调了影响CRC中类黄酮合成的复杂调控机制,而类黄酮对果实的发育和质量至关重要。
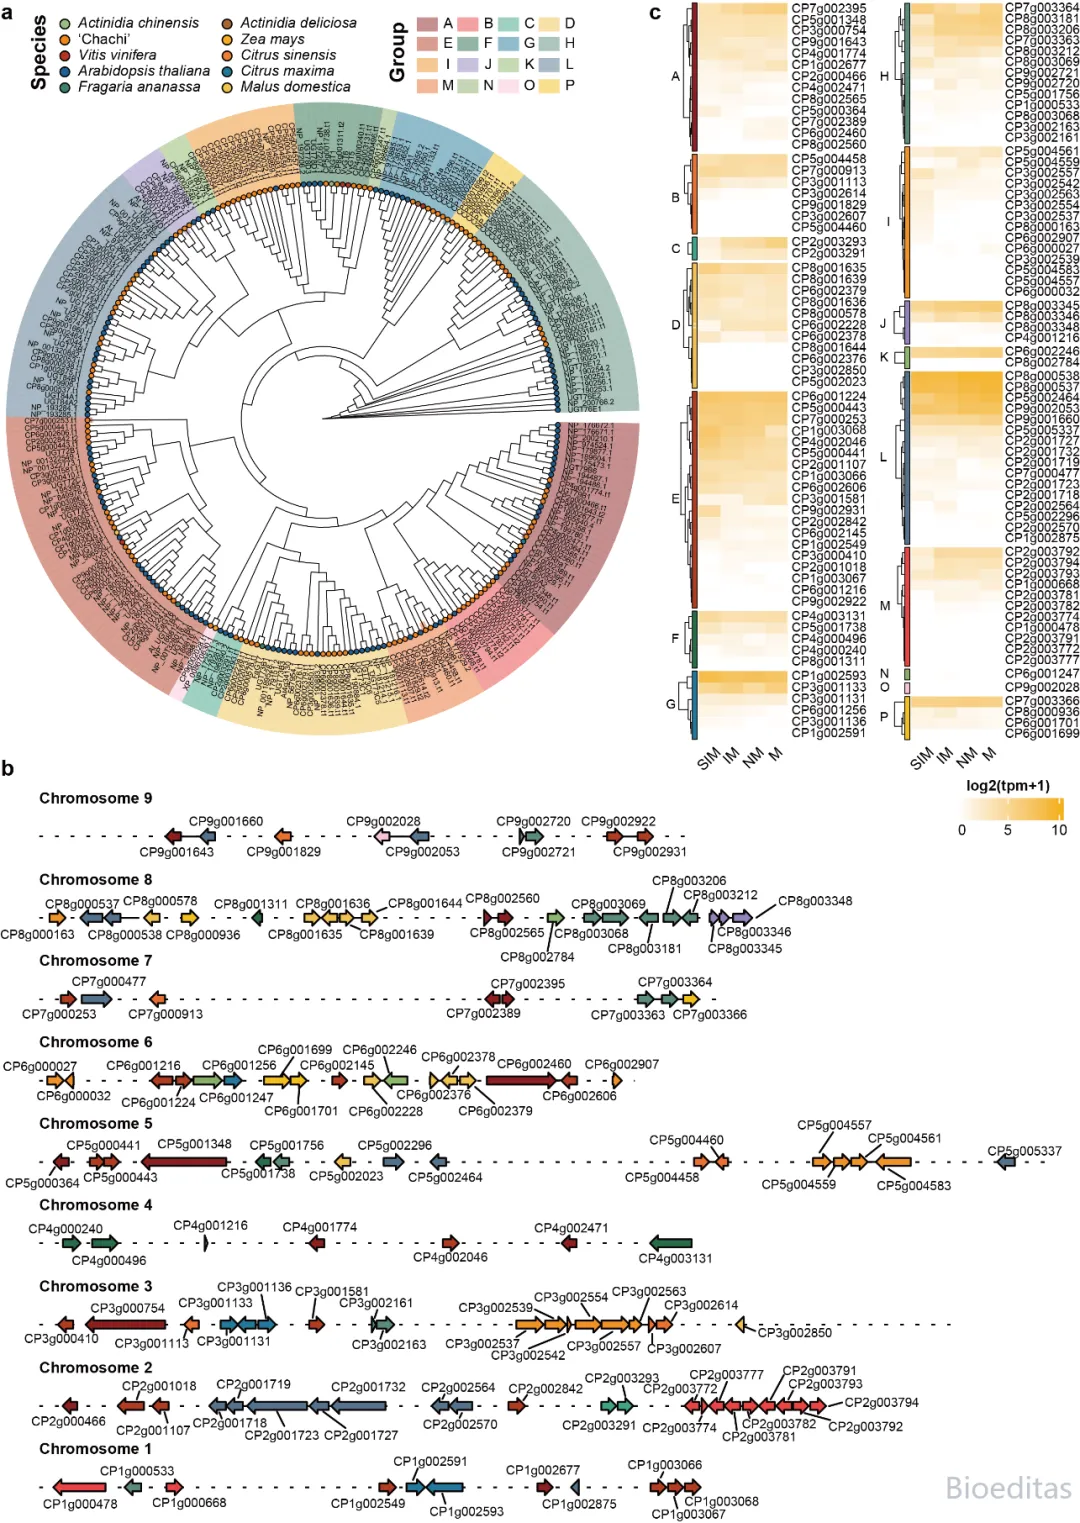
▲CRC基因组UGT基因家族分析
6
CRC中的UDP-糖基转移酶的特征
由于黄酮类化合物通常被糖基化,研究人员在CRC基因组中发现了129个UDP-糖基转移酶(UGTs),它们在蛋白质的C端含有一个保守的植物次生产物糖基转移酶(PSPG)结构域。CRC中UGT基因的数量明显高于拟南芥等模式植物(107个),但低于苹果和葡萄。UGT基因在整个基因组中分布不均,第2、3和8号染色体上含有近一半的UGT基因。UGT 基因的内含子图谱显示,55个 UGT(43%)缺乏内含子,48个UGT(38%)包含一个内含子,11个UGT(9%)包含两个内含子,而其余14个UGT包含两个以上的内含子。为了评估UGT基因家族的进化关系,研究人员根据拟南芥的UGT基因和之前报道的其他物种的UGT基因构建了一棵系统进化树。根据UGT基因的通用命名规则,将CRC中的UGT基因分为16组,分别命名为A组至P组。在CRC中,E 组的UGT数量最多(n=19),其次是L、I、A和H组,每个组都有超过12个成员。
分析了CRC果皮中UGTs在四个阶段的基因表达情况,在所有UGTs中,有82个(63.5%)基因在果实发育的一个或多个阶段(TPM>1)有表达。其中,超过34个UGT 基因在SIM果实中的转录水平最高,分别有10、6和5个UGT基因属于E、D和I组。

