文献集锦 | QTL分析揭示苹果红肉色素沉着新见解
近期,法国昂热大学在Horticulture Research上发表了研究成果,进行了基于家系的定量性状位点(QTL)绘图,以破译五个F1互联家系中红肉性状分离的红肉颜色遗传决定论。
文章题目
Tracing the Color: QTL analysis reveals new insights into red-flesh pigmentation in apple (Malus domestica)
第一作者:Pierre Bouillon
通讯作者:Jean-Marc Celton
通讯单位:法国昂热大学
杂志:Horticulture Research
影响因子:8.7/Q1
文章链接:
https://doi.org/10.1093/hr/uhae171
研究背景
大多数现代苹果栽培品种源自数量有限的优良基因型,这些栽培品种大致可分为红皮果和黄皮果,这种区分一旦确定,在果实表型方面实现创新突破就变得具有挑战性。红肉苹果的育种可追溯到1897年,果肉的颜色与花青素的积累密切相关,因此提高植物产品中花青素营养成分的含量非常重要。
花青素属于抗氧化化合物类别,还包括黄烷-3-醇(可溶性单宁和缩合单宁)、黄酮醇、羟基桂皮酸类、二氢查耳酮,它们是主要的多酚。以往的研究表明,驯化和选择过程影响了白肉苹果果实的生化特征,包括单宁、有机酸和酚酸,而一些酚类物质则不受选择的影响。最近对红肉苹果的研究发现,与白肉苹果相比,红肉苹果通常含有较多花青素、二氢查耳酮、酚酸和有机酸,但黄烷-3-醇的含量较低。
苹果果实中红色果肉颜色的形成取决于MdMYB10基因的特定等位基因。虽然花青素代谢途径的特征已经很清楚,但目前的遗传模型无法解释观察到的红色果肉色素强度的变化。以前的研究侧重于将花青素总含量作为表型性状来描述整体果肉颜色。虽然这种方法有助于全面了解颜色表达所涉及的遗传机制,但有必要通过分析其他酚类化合物类别的变化,并采用定量的方法,来更好地了解微妙的肉色变化和分布所涉及的分子机制。
技术方案
主成分分析➕QTL检测
研究意义
研究人员提出了一个模型:花青素和黄烷-3-醇最终产物之间的竞争对红肉颜色的形成起着决定性作用。在这个模型中,有利于高红肉颜色强度的等位基因可以从白肉和红肉亲本中遗传,为未来红肉苹果改良育种工作奠定了基础。
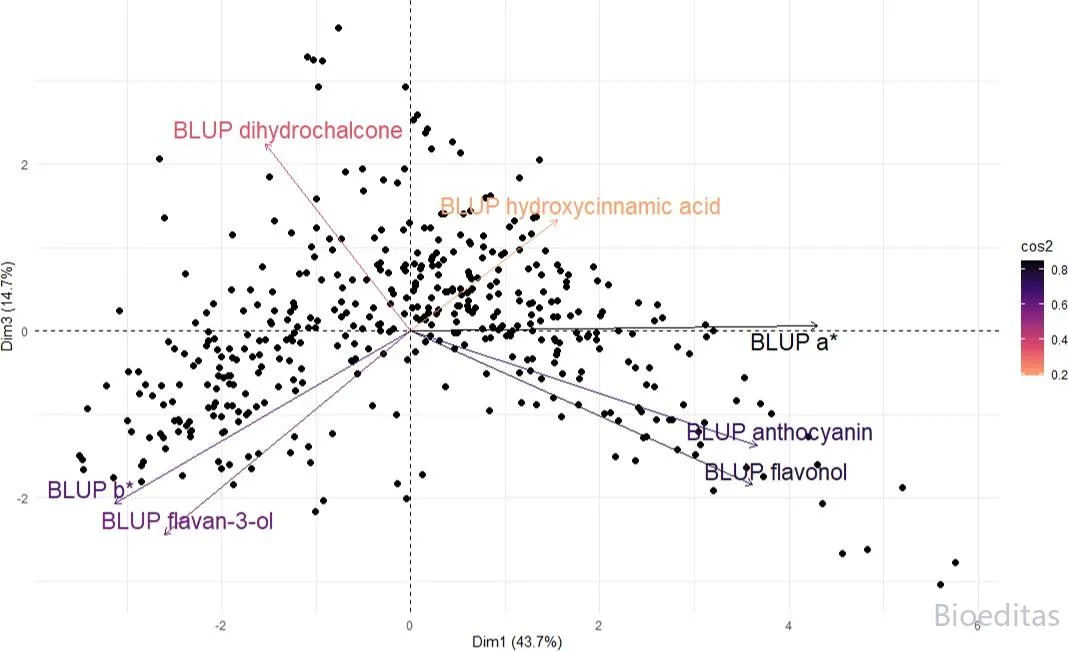
▲对来自五个F1杂交家族的432个基因型的颜色描述符和酚类化合物进行主成分分析
b*和酚类QTLs的共定位
BLUP黄酮的LG1-QTL、BLUP二氢查尔酮的LG15-QTL和BLUP羟基肉桂酸的LG17-QTL与之前报道的QTLs共定位;LG8和LG16上的BLUP b* QTL与果实酸度的Ma和Ma3基因座共定位;此外,研究人员在LG8和LG16 BLUP b* QTL区域发现了WRKY TFs(MD08G1067700、MD16G1063200、MD16G1066500)。研究人员推测这些QTL可能与依赖于液泡酸度的花青素增色效应有关。应开展进一步研究,以确认b*和pH基因座之间的共定位,并研究液泡酸度对颜色表达的影响。
minor a* QTLs与推定候选基因的共定位
大多数 BLUP a* QTL与之前报告的红肉颜色QTL一致,这里首次报告了LG1和LG11 BLUP a* QTL,证实了定量颜色分析在QTL检测中的准确性和附加值。例如,LG7上的一个QTL仅在2022年25-57 cM处检测到,PVE为3.3%。该QTL区域与MdMYBPA1共同定位,后者在低温条件下促进红肉苹果花青素的合成。
在LG1、LG2、LG8 和LG11上检测到了Minor BLUP a* QTL,通过苹果基因组数据,可以筛选出与这些Minor QTL区域相关的候选基因。在 LG1-QTL和LG8-QTL的QTL区间分别发现了花青素途径的结构基因查尔酮异构酶(CHI)和黄酮醇合成酶(FLS)。FLS催化黄酮醇的合成,这与红肉果实中较高的黄酮醇含量是一致的。事实上,LG8-QTL与BLUP黄酮醇相关QTL共定位,LG2-QTL与UDP-糖基转移酶和ERF109共定位,它们是苹果皮中与阳光有关的花青素合成的关键调控因子。事实上,光照是影响苹果果实颜色的最重要环境因素之一,红肉颜色也可能受到光照的正向调节。
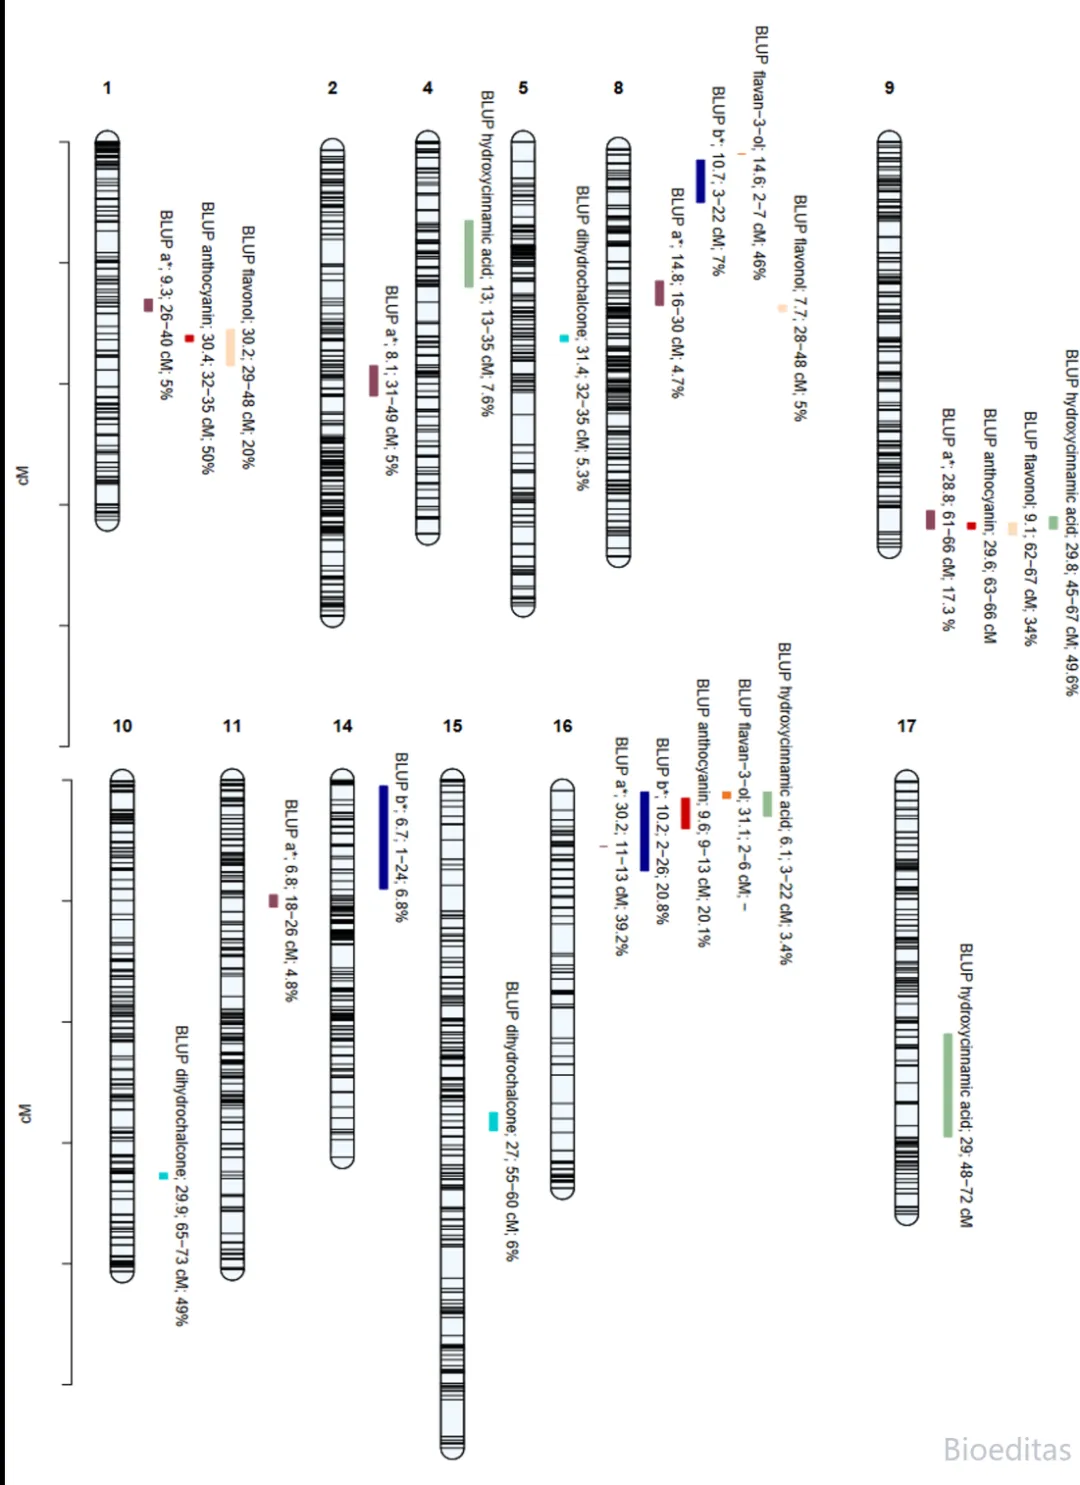
▲控制果肉颜色参数和酚类化合物的QTL定位
所有天然合成的花青素都通过细胞质糖基转移酶在 3-位上进行糖基化,以增加稳定性和溶解性,并促进向液泡的运输。G2-0TL和LG11-QTl定位在糖基转移酶基因上,这表明红肉颜色的获得也可能由花青素分解代谢决定,而不仅仅是初级合成。事实上,糖基化在花青素的积累过程中起着重要作用,它可以稳定花青素,并作为花青素向液泡运输的信号。ABC转运体参与糖基化花青素向液泡的转运。
基因表达分析可以加深对花青素合成和分解之间复杂的相互作用的理解,这种相互作用发生在果实整个发育过程中的颜色获得过程中。Wanget等人通过比较红肉果实和白肉果实的转录组,发现了花青素合成的关键调控因子。扩大对同一果实白肉和红肉部分的转录组比较分析,有助于了解类黄酮合成基因与协调苹果红肉色素沉着的调控因子之间复杂的相互作用。
LG9和LG16 QTL的单倍型特征分析
LG9和LG16 QTL与之前报道过的QTL共同定位,LG9-QTL区域包含MdMYB10,而R6-MdMYB10等位基因是苹果红肉色发育的先决基因。LG9QTL 单倍型已成功与R1-MdMYB10和R6-MdMYB10相关联。有趣的是,在RF1-2家族中还发现了第三种单倍型,称为R1'-MdMYB10 。MdMYB10第三个等位基因的出现有力反驳了“MYB10等位基因多样性仅限于两个等位基因”的观点。这一观察结果与有关红皮颜色的类似发现一致。
研究人员没有检测到R1'-MdMYB10与R6-MdMYB10的遗传效应,这表明R1和R1'对红皮色素具有相同的遗传效应。此外,MdMYB10等位基因的这种多样性与其他与MYB10相关的花青素合成物种(如草莓)的研究一致。他们发现了FaMYB10的三个等位基因变体:FaMYB10.2激活花青素合成,导致表皮和果肉颜色变化,而FaMYB10的两个独立突变则导致白皮表型。此外,红肉色素沉着与FaMYB10.2启动子中存在转座子插入有关。
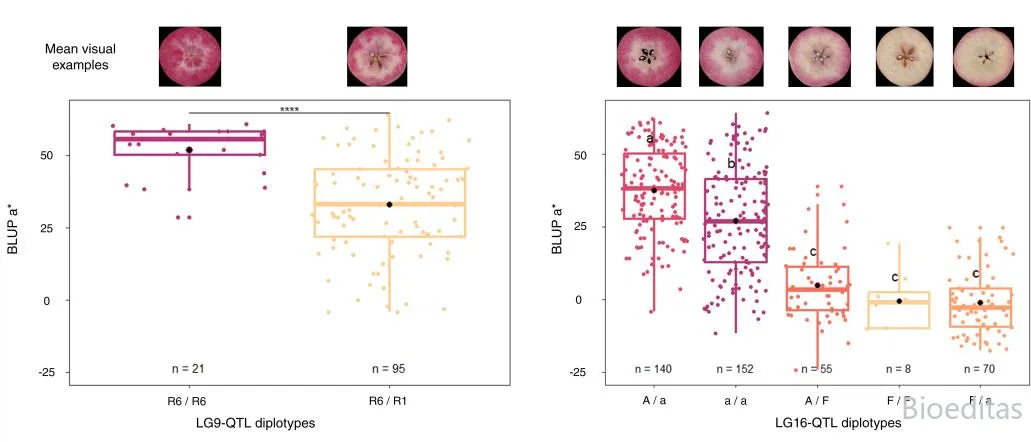
▲LG9-QTL的RF1-5子代单倍型(左)和LG16-QTL的五个F1子代单倍型(右)的BLUP a*分布
研究结果表明,R6-MdMYB10同型基因与较高的表型值相关,这表明存在加性效应。LG16-QTL与一个白花素还原酶(LAR)结构基因共定位,而LAR催化白花素向黄烷-3-醇的转化。LG16 的顶端含有与Ma基因座和许多酚类QTL相关的代谢产物QTL(mQTLs)“热点”。尽管羟基肉桂酸是LAR底物的上游代谢物,但研究人员检测到了另一个羟基肉桂酸QTL,在该区域发现了一些MYB和bHLH类型的TFs,它们可能是造成羟基肉桂酸QTL的原因。LG16-QTL的存在证实了花青素/黄烷-3-醇之间的竞争是共同生物合成途径的最终产物,H16-F单倍型与高黄烷-3-醇/低花青素特征相关,而H16-A和H16-a单倍型与低黄烷-3-醇/高花青素特征相关。
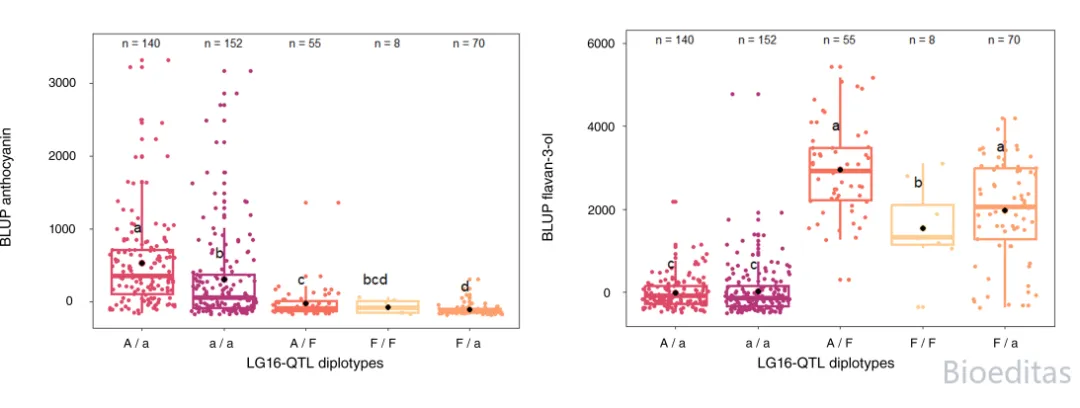
▲LG16-QTL F1子代单倍型的BLUP花青素和BLUP黄烷-3-醇值分布
对红肉色素遗传机制的新认识
研究结果为控制苹果红肉发育的遗传机制提供了新的见解,事实上,花青素和黄烷-3-醇合成之间的竞争是获得红肉颜色的关键因素,在R6-MdMYB10的作用下,这种竞争主要由LG16-QTL驱动。野生红肉苹果(Malus sieversii f. niedzwetzkyana)的果实过于酸涩,不能直接用作食用苹果。与白肉甜品苹果杂交的最初目的是将红肉基因座引入优良基因中,将新的表型与甜苹果的理想感官特性结合起来。在这一过程中,由于涩味和苦味(由黄烷-3-醇影响)的负选择,红肉颜色的有利等位基因从白肉背景中遗传下来,这间接促进了花青素的合成。LG9和LG16有利等位基因的组合产生了高着色、低涩味的红肉表型。不过,目前的研究只对样品中的可溶性单宁进行了评估。进一步的研究还可以考虑基因型与环境之间的相互作用,这将有助于育种者选择适合大多数生长条件的表型。
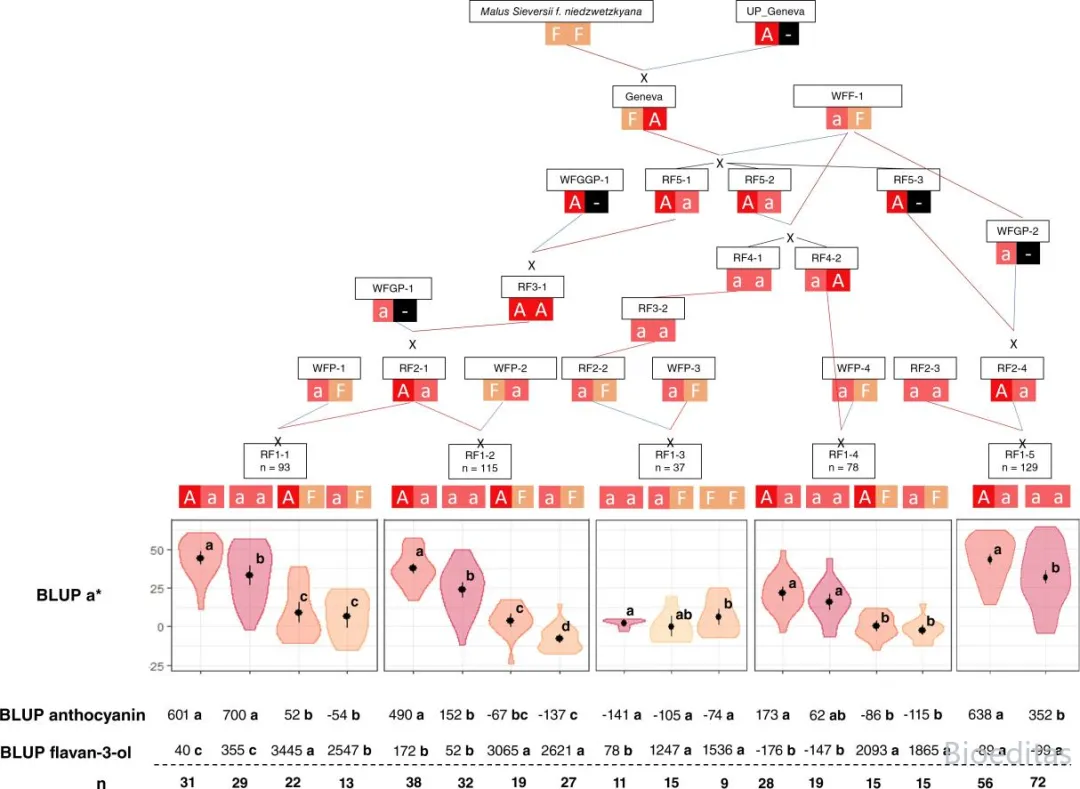
▲亲本和祖先栽培品种以及各群体中BLUP a*、BLUP花青素和BLUP黄烷-3-醇在LG16-QTL上的单倍型
在这项研究中,研究人员共鉴定了24个控制红肉颜色(a*和b*颜色数据)和酚类特征(花青素、黄烷-3-醇、黄酮醇、羟基肉桂酸和二氢查尔酮)的QTL。由于开发了定量表征果肉颜色的方法,研究人员在LG1和LG11上检测到了两个以前未发现的与红色果肉颜色有关的QTL, 证实了LG16上存在控制苹果红肉色的主要 QTL,并描述了与花青素/黄烷-3-醇平衡和红肉色增强有关的遗传机制。
由于H9.R6等位基因没有与H16-F单倍型结合,因此没有研究LG9和LG16 QTLs之间的相互作用。然而,R6-MdMYB10同源基因与有利的LG16-QTL单倍型(H16-A和H16-a)的结合确定了一种新的表型,可作为红肉育种的目标。这些结果突显了育种者在选择时考虑白肉亲本的必要性,因为红肉颜色的positive/negative等位基因都可能从非红肉基因背景中遗传。
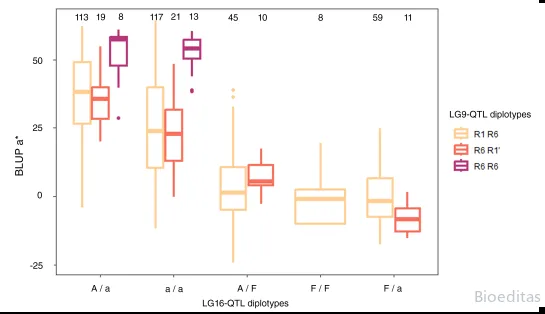
▲LG9和LG16 QTL子代单倍型的BLUP a*分布情况

