
文献集锦 | 三七综述:活性成分、药理作用、人参皂苷生物合成及生产的主要生物技术方法
近期,中国中医科学院中药研究所中药鉴定与安全性检测评估重点实验室在Horticulture Research上发表了研究成果,总结了有关田七代表性生物活性成分及其多种药理作用的最新研究,强调了人参皂苷的生物合成和调控,重点介绍了目前人参皂苷生产的主要生物技术方法。
文章题目
Panax notoginseng: panoramagram of phytochemical and pharmacological properties, biosynthesis, and regulation and production of ginsenosides
第一作者:Guangfei Wei
通讯作者:Linlin Dong
通讯单位:中国中医科学院中药研究所中药鉴定与安全性检测评估重点实验室
杂志:Horticulture Research
影响因子:8.7/Q1
文章链接:
https://doi.org/10.1093/hr/uhae170
研究背景
三七是五加科人参属多年生草本植物,被广泛用作药材和保健食品,起源于约2500万年前的东亚和北美,主要生长在中国西南的云南和广西地区,云南变种因其药用价值而受到高度重视。三七的代谢产物对其药理作用起着至关重要的作用,含有多种次生代谢产物,包括人参皂苷、有机酸、酯类、多糖、氨基酸、甾醇和类黄酮等,这些成分对神经系统和免疫反应有显著的治疗作用。随着对三七的需求不断增加,对其农业生产和活性化合物生物合成方法的改进也在迅速发展,这一进步对于草药和资源的发展至关重要。植物代谢物通过复杂的代谢网络进行合成、运输和代谢。尽管如此,在全面分析这些关键活性成分的生物合成及其转录调控网络方面仍存在明显的差距。
研究意义
综述涵盖了过去几十年的研究进展,为质量评价提供了见解,并为合理利用和开发三七资源提供了前景。现代分子生物学技术有助于探索人参皂苷生物合成的分子机制,这对培育新型五加科人参品种至关重要。鉴定人参皂苷生物合成的功能酶将有助于制定有效和大规模生产特定人参皂苷的潜在策略。
本文主要从以下四个方面进行综述:
(1) 人参的生物活性成分;
(2) 人参的药理作用;
(3) 人参皂苷的生物合成和调控;
(4) 人参皂苷的生物技术生产方法。深入探讨人参皂苷的结构、分布、生物合成途径、转录调控框架和生物技术生产技术,对于对三七进行定性评估和优化开发利用是必不可少的。
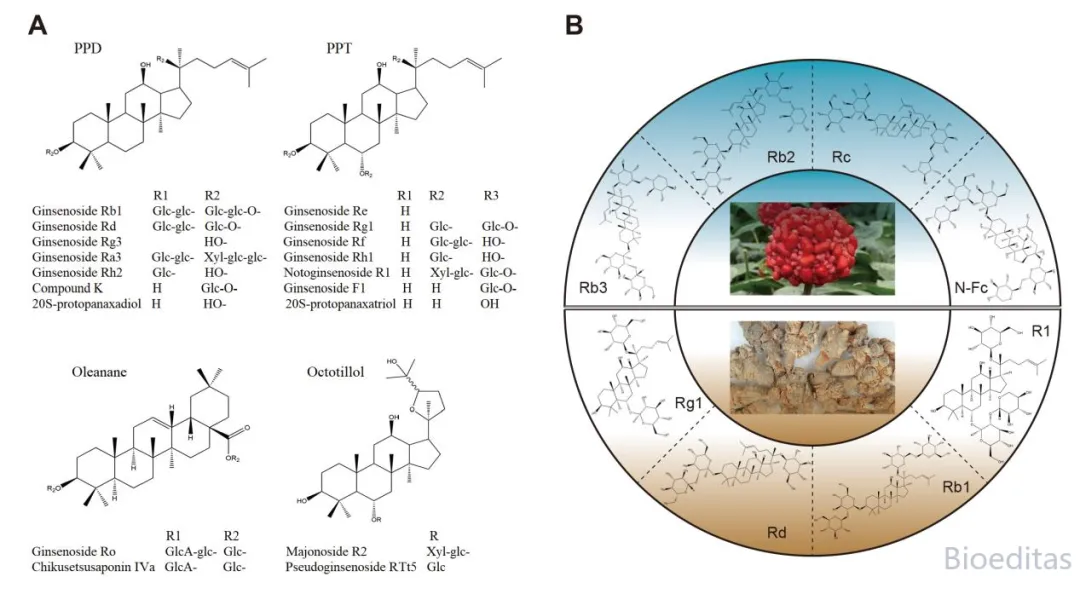
▲从三七中分离的人参皂苷
生物活性成分
Bioactive ingredients
皂苷 | Saponins
皂苷是三七中最重要的活性化合物,到2023年已鉴定出200多种类型。上图所示的人参皂甙主要分为三种类型:达玛烷型四环三萜类化合物、齐墩果烷型五环三萜类化合物和奥克梯隆型五环三萜类化合物。其中,达玛烷型人参皂甙可分为两个亚型:二醇组人参皂甙(PPD)和三醇组人参皂甙(PPT)。PPD 型人参皂甙通常在C-3、C-20或两个位置都与糖结合,而PPT型人参皂甙则在C-3、C-6 和C-20位置与糖结合。奥克梯隆型人参皂甙的特点是C-20侧链上有一个五元环氧环,而齐墩果酸型人参皂甙的特点是C-20侧链经过修饰。PPT 型人参皂甙(如Rg1、R1、Re等)的浓度范围为2.0-40.0 mg/g。最常见的PPD型人参皂甙Rb1和Rd的浓度分别为26.7-30.6 mg/g和5.7-8.4 mg/g。总的来说,R1、Rb1、Rg1、Rd和Re占了三七中所有人参皂甙的90%。
人参皂苷在不同植株部位和不同发育阶段的分布和浓度各不相同:三年生植株的人参皂苷总含量是两年生植株的1.4倍,其中PPD型人参皂苷主要分布在地上部分,而PPT型人参皂苷主要分布在地下部分;叶片中特别富含PPD型人参皂甙,包括Rb3、Rc和Rb2,而主根中则含有大量PPT型人参皂甙,如Rg1、Re和N-R1。
氨基酸 | Amino acids
三七素是一种非蛋白氨基酸,具有很强的止血活性和强烈的神经兴奋毒性,其浓度因植物的年龄和部位而异,花和叶片中的含量最高。具体来说,三年生花朵中的三七素含量为2.98%,是两年生花朵(2.01%)中的1.48倍。此外,干燥方法也会显著影响三七素的含量,50 ℃干燥处理的产量最高,而 40 ℃冷冻干燥的产量最低。此外,三七富含蛋白质氨基酸,包括精氨酸、天冬氨酸、谷氨酸和亮氨酸,这些氨基酸在不同植物部位和环境中的浓度和组成各不相同。花朵的氨基酸总含量最高,但缺乏精氨酸,而根部则缺乏精氨酸和蛋氨酸。迄今为止,研究人员已在三七的根中鉴定出19种氨基酸。
多糖 | Polysaccharides
多糖是三七中另一类重要的药效学活性成分,主要包括多糖 I、II(IIa、IIb)、III等类别,主要由葡萄糖、半乳糖、阿拉伯糖、乳糖、鼠李糖、木糖等组成,总体含量约为9.45%。值得注意的是,已鉴定出一种淀粉样多糖(PNPN)和六种果胶变体,即PNPA-1A、PNPA-1B、PNPA-2A、PNPA-2B、PNPA-3A和PNPA-3B。此外,三七粗多糖提取物由阿拉伯糖、半乳糖醛酸、D-甘露糖、D-葡萄糖和半乳糖组成。截至2022年,研究人员共记录了41种来自三七的多糖,其含量受地理位置、收获时间和特定植物部位等因素的显著影响,含量最高的时间通常是四月,最低的时间为七月。从地理位置来看,燕山的多糖含量最高,而广西的含量较低。在植物内部,多糖的含量各不相同,叶肋含量最高,茎和叶的含量最低。
黄酮类化合物 | Flavonoids
从三七中分离出的黄酮类化合物共有13 种,主要包括槲皮素、槲皮素-7-葡萄糖苷、黄酮苷槲皮素-3-O-槐糖苷、槲皮素-3-O-芹菜素、山柰酚、山柰酚-7-O-α-L-鼠李糖苷、 山奈酚-3-O-β-D-半乳糖苷、山奈酚-3-O-β-D-半乳糖(2→1)葡萄糖苷和槲皮素-3-O-β-D-半乳糖(2→1)葡萄糖苷。这些类黄酮的含量因地区而异,在不同部位的含量也有显著差异:茎叶为1.77%,花为1.43%,根茎为0.50%,须根为0.34%,直根为0.19%。
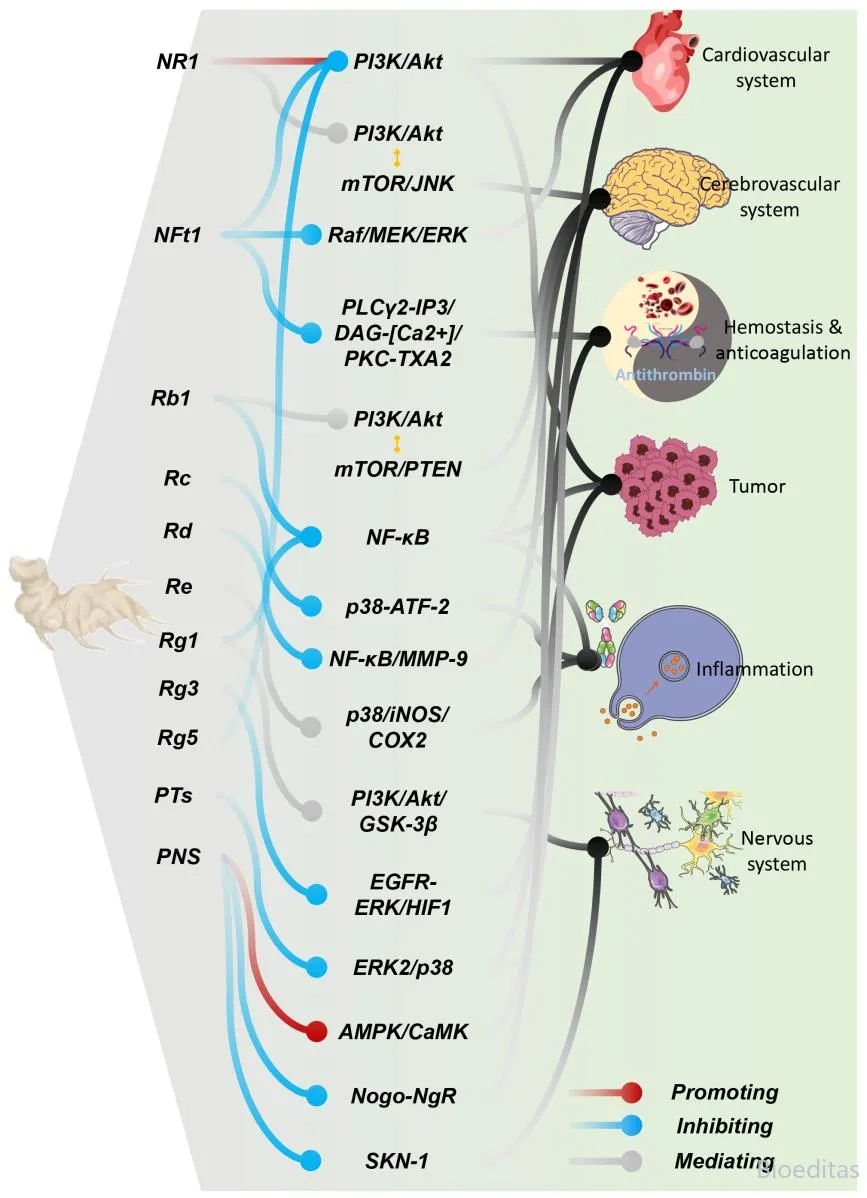
▲三七药理作用及相关机制
药理作用
Pharmacological activities
心肌保护作用 | Cardioprotective effect
研究表明,三七对心肌细胞具有强大的保护作用,可通过多种复杂的信号传导途径防治心血管疾病。例如,三七皂苷R1通过阻碍PI3K/Akt信号通路的激活,可抑制经皮腔内血管成形术后的再狭窄;在HIF-1α的刺激下,与PI3K/Akt和 Raf/MEK/ERK信号通路有关的VEGF表达也会受到HIF-1α的促进。此外,已知PNS及其主要成分人参皂苷Rg1和R1可通过AMPK Thr 172和CaMKII Thr 287的磷酸化显著增强心肌梗死后内皮细胞的迁移和血管生成。
脑血管保护作用 | Cerebrovascular protective effect
PNS能有效缓解神经功能缺损、脑梗塞、水肿和神经元死亡。例如,人参皂甙Rd有可能通过PI3K/Akt/GSK-3β途径减少脑缺血诱导的tau磷酸化,并通过NF-κB/MMP-9途径减轻对血脑屏障的损害;人参皂苷Rb1还能影响Akt/mTOR/PTEN信号通路,对各种神经系统疾病有治疗作用;人参皂苷Rg1还通过阻断NF-κB核转位和IκBα磷酸化,以及降低谷氨酸和天门冬氨酸水平,在预防IR诱导的神经损伤方面发挥作用。
神经保护作用 | Neuroprotective effect
对人参皂苷治疗这些疾病的益处进行的研究发现,其潜在机制涉及SKN-1信号通路和AD相关circRNAs的表达。人参皂苷Rg1和Rg2可通过调节相关代谢途径,增强认知功能并减少海马amyloid-β(Aβ)沉积;人参皂苷Rg1还能通过PI3K/Akt/GSK-3β通路介导的抗氧化和抗炎作用来对抗认知功能衰退;人参皂苷Rb1还可用于治疗亨廷顿氏病、脑外伤和脑缺血;而人参皂苷Rd则可减轻兴奋毒性、调节神经生长因子并促进神经再生。
抗肿瘤效应 | Anti-tumor effect
研究表明,三七对包括肝脏在内的几种癌症具有显著的抗肿瘤作用。PNS通过各种机制影响免疫反应并抑制肿瘤增殖。例如,它们通过抑制IDO1的表达来减少结直肠癌环境中Treg细胞的免疫抑制,而IDO1是由转录激活因子1(STAT1)和信号转导因子控制的;Rb1通过调节RNA依赖性蛋白激酶和NF-κB信号通路,抑制TNF-α诱导的MMP-9的产生 ;R1通过激活PI3K/Akt通路和抑制miR-21,提高了抗肝癌的疗效,明确了它在抗击肝细胞癌中的作用;Rg3通过阻断表皮生长因子受体通路,包括肝细胞癌中磷酸化的细胞外信号调节激酶和缺氧诱导因子1α,减少NHE1的表达;此外,人参皂苷Rg5通过破坏PI3K/Akt信号通路促进细胞凋亡和自噬。
抗炎效果 | Anti-inflammatory effect
人参皂苷可以有效减少IL-1β和TNF-α等促炎细胞因子,从而减轻大脑缺血性损伤。Rb1及其代谢产物化合物K能阻止NF-κB、MAP 激酶(ERK、JNK和p-38)、IKK-β和白细胞介素-1受体相关激酶-1 在LPS刺激的小鼠腹腔巨噬细胞中的活化;人参皂甙Rd的抗炎特性源于其下调NF-κB的能力,从而降低iNOS和COX-2的表达;人参皂苷Re 对1 μg/ml LPS处理的小胶质细胞具有神经保护作用,而神经炎症中的神经保护事件是通过磷酸化-p38、iNOS和COX2信号通路发生的。
止血和抗凝 | Hemostasis and anticoagulation
研究表明,三七皂苷(Rg1、Re和R1)通过减少细胞内钙动员和停用ERK2/p38通路,有效抑制血小板聚集;进一步的研究表明,Rg1和Rg2能显著延长凝血时间,其中Rg2比Rg1表现出更强的抗凝作用;Rg2、Rg3和原人参三醇被确定为潜在的天然凝血抑制剂,这也是它们具有抗血小板聚集特性的原因之一;Rh1和人参皂苷F1也显示出防止血小板聚集的能力;此外,人参皂苷Ft1通过增强PLCγ2-IP3/DAG-[Ca2+]/PKC-TXA2信号通路影响凝血过程。
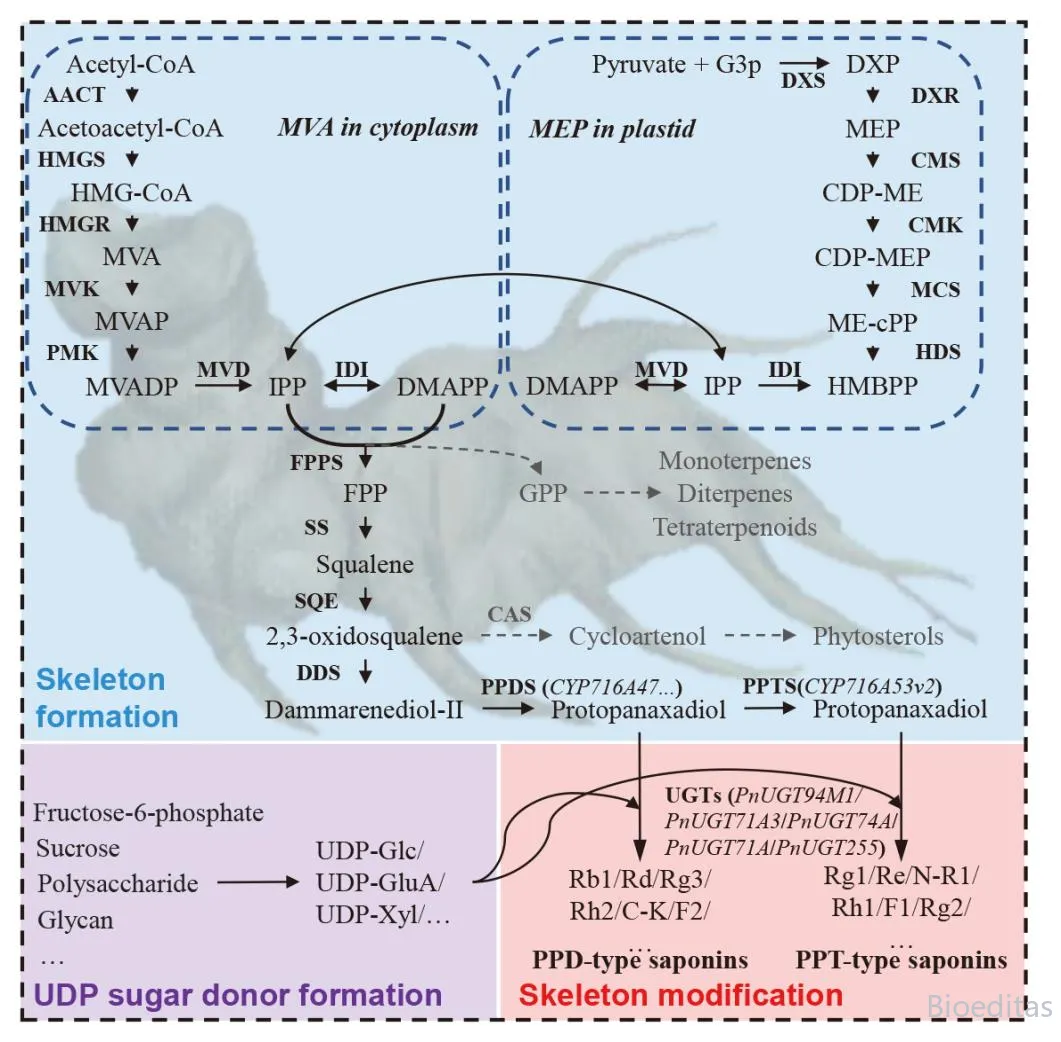
▲三七中人参皂苷可能的生物合成途径
皂苷的生物合成与调控
Biosynthesis and regulation of saponins
人参皂苷的生物合成 | Biosynthesis of ginsenosides
人参皂苷的生物合成主要包括三个阶段:人参皂苷骨架的形成、糖酵解酶体合成和骨架的修饰,其合成主要通过细胞质中的甲羟戊酸 (MVA)途径和质体中的甲基赤藓糖磷酸(MEP)途径进行。
转录调控 | Transcriptional regulation
人参皂苷的生物合成和积累具有独特的时空模式。参与生物合成的基因的表达受多种转录因子(TFs)和非编码 RNAs(ncRNAs)的调控,其调控网络错综复杂。这些转录因子和非编码RNA可对生物和非生物信号做出反应,在调节人参皂苷的生产过程中发挥着至关重要的作用。
环境监管 | Environmental regulation
环境因素通过药用植物中的激素信号-转录调控网络共同影响有效成分的合成,这种环境调控包括对重金属、各种环境条件和施肥的反应。
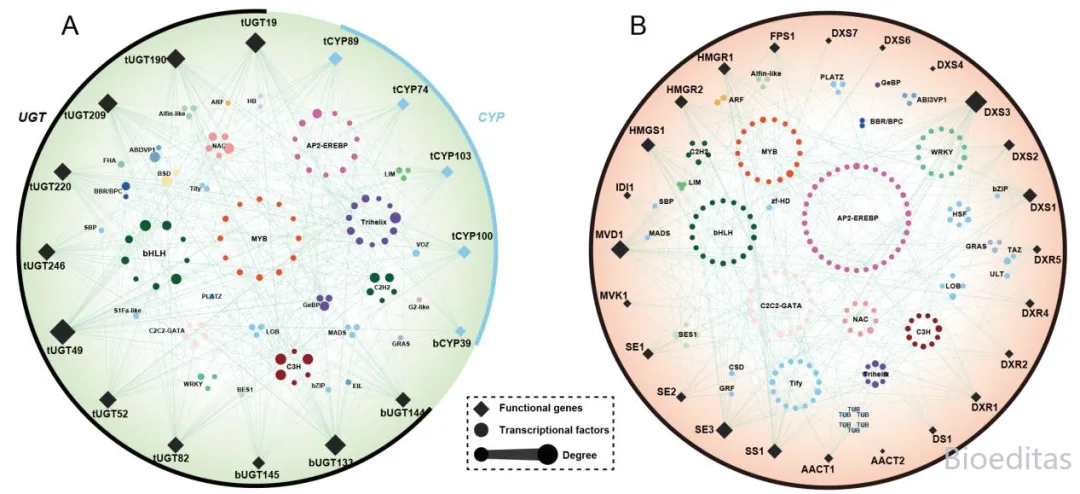
▲TFs与三七人参皂苷合成相关基因的调控关系
皂苷生产的生物技术方法
Biotechnological methods for saponin production
三七生长速度较慢,在田间栽培中,从种子发芽到收获根部通常需要3-4年的时间,在栽培过程中还必须应对植物病原体和害虫等挑战。代谢工程为提高天然产品的产量提供了一种可行的替代方法。因此,建议采用组织培养、不定根、转基因植物和微生物细胞工厂等生物技术方法来提高人参皂苷的产量。
组织培养 | Tissue culture
悬浮培养是生产三七人参皂甙的有效方法。培养基的成分(如糖类)对培养细胞中的人参皂苷浓度有很大影响。具体来说,HEJA可提高原人参二醇6-羟化酶的活性,从而增加细胞培养物中Rb1和Rg1的含量。在刺激人参皂苷生物合成和改变其组成方面,HEJA比MJA更有效,用HEJA处理可使人参皂苷的总含量增加60%,Rb/Rg比率增加30%。此外,向培养物中添加1 mM苯巴比妥可提高PPT型人参皂甙(Rg1+Re)的含量。在培养物中加入200 μM MJA可使PPD型和PPT型人参皂苷的含量分别提高9倍和2倍。HEJA、内源性JA和MeJA等植物激素可诱导角鲨烯环氧化酶(SE)上调,抑制环阿屯醇合酶(CAS),促进人参皂苷在三七细胞中的合成。
15 年来,人们一直有效地利用毛根和不定根培养来生产稳定的生物量和高产量的人参皂苷。研究发现,从野生型三七根中提取的不定根系的总人参皂甙产量高达17.92 mg/g。用 5 mg/L的茉莉酸处理野山参不定根后,总人参皂苷含量最高,达到71.94 mg/g,比对照组增加了8.45倍。茉莉酸和二氢茉莉酸甲酯都能显著提高这些根中Rd和Rg的含量。
转基因植物 | Transgenic plants
尽管在通过组织和细胞培养生产人参皂苷方面做出了巨大努力,但产量仍然相对较低。事实证明,利用基因工程来操纵基因表达是提高人参皂苷含量的有效策略。与野生型细胞相比,转基因田七细胞系的法尼基焦磷酸合成酶(FPS)表达量较高,而CAS表达量较低,从而导致人参皂苷总产量增加而植物甾醇水平下降。在转基因FPS阳性的三七细胞系中,PnFPS的相对表达量和人参皂苷含量都明显高于非转基因对照组Rh1增加了2.66倍,Rg1增加了1.76倍,Re增加了4.35倍,Rd增加了2.90倍。此外,提高转基因三七细胞中β-AS的表达,可提高人参皂苷生物合成关键酶的表达,并增加特定人参皂苷的含量。将三种酶基因(PnDDS、CYP12H和UGTPn3)导入烟草,三种外源基因在转基因植物烟草的根、茎和叶中表达,从而成功合成人参皂苷Rh2及其前体。
已知PnbHLH1和PnERF1等转录因子可促进人参皂苷的生物合成和积累。在表达PnbHLH1的三七细胞系中,人参皂苷的总含量是对照的两倍多。同样,在进行了PnERF1转基因修饰的细胞系中,人参皂苷的总含量大约翻了一番,从对照系的 40 mg/g增加到80 mg/g。此外,与野生型细胞和PnCAS RNAi细胞相比,针对PnCAS的RNAi和PnbHLH的过表达都会导致人参皂甙总量和单个人参皂甙(Rd、Rb1、Re、Rg1和R1)含量的增加。
微生物细胞工厂 | Microbial cell factories
酵母细胞工厂
酵母细胞工厂,特别是基于合成生物学和异构表达系统的酵母细胞工厂,被证明可有效合成各种天然产品,如在酿酒酵母中共表达HMGR、DS、β-AS、OAS、PPDS、PPTS和细胞色素P450基因,可以同时产生PPD、PPT和齐墩果酸。将PPDSeATR1蛋白融合到啤酒酵母中并耐受ROS的强化饲料批量发酵技术可将PPD水平提高到4.25 g/L。一种新开发的酵母底盘可在摇瓶中达到529.0 mg/L PPD,并在10 L饲料批量发酵中提高到11.02 g/L;此外,通过饲料批量发酵,3b-O-Glc-DM和20S-O-Glc-DM人参皂苷的浓度可分别达到 2.4 g/L和 5.6 g/L;含有UGTPg1的酵母工程菌株可生产出浓度为1.4 mg/L的人参皂苷化合物 K;在酵母中过表达tHMG1能将3β,12β-Di-O-Glc-PPD的产量从6.17 mg/L提高到9.05 mg/L;最后,含有PgUGT71A53和PgUGT71A54的Rg1生产酵母菌株可以生产1.95 g/L的 Rg1。
细菌和真菌细胞工厂
微生物发酵法是通过微生物酶水解底物人参皂苷来生产稀有人参皂苷的。例如,来自Dictyoglomus turgidum和Pyrococcus furiosus的酶可将PPT型人参皂甙(如 R1、R2、Re、Rg1、Rg2、Rh1、Rf、F1、F3和F5)完全转化为210 mg/L的苷元 PPT;Cladosporium xylophilum还能将主要人参皂苷Rb1、Rb2、Rb3、Rc和非人参皂苷Fa转化为稀有人参皂苷F2(0.99 mg/mL)、Rd2(0.67 mg/mL)、Fd(0.24 mg/mL)和 Fe(0.24 mg/mL);重组β-葡萄糖苷酶已被用于将Re和Rg1分别转化为Rg2(0.83 mg/mL)和Rh1(0.6 mg/mL);Enterobacter chengduensis将Rg1转化为F1的转化率为13.24%;Trichoderma koningii将Rb1转化为Rd(40.00%)和Rg3(32.31%);Penicillium chermesinum将Rb1转化为Rd的转化率高达74.24%;内生菌 Coniochaeta sp.能将Rb1转化为稀有的人参皂苷CK,转化率为11.62%;Pestalotiopsis biciliata 能将Rb1转化为稀有人参皂苷F2、CK和Rd,转化率分别为53%、11%和10%;Bifidobacterium lactis将Rb1、Rc和Rb2转化为Rd,并进一步转化为稀有的人参皂苷F2,转化率达到25%;黑曲霉中的β-葡萄糖苷酶水解Rb1生成Rg3,转化率为 48.5%。
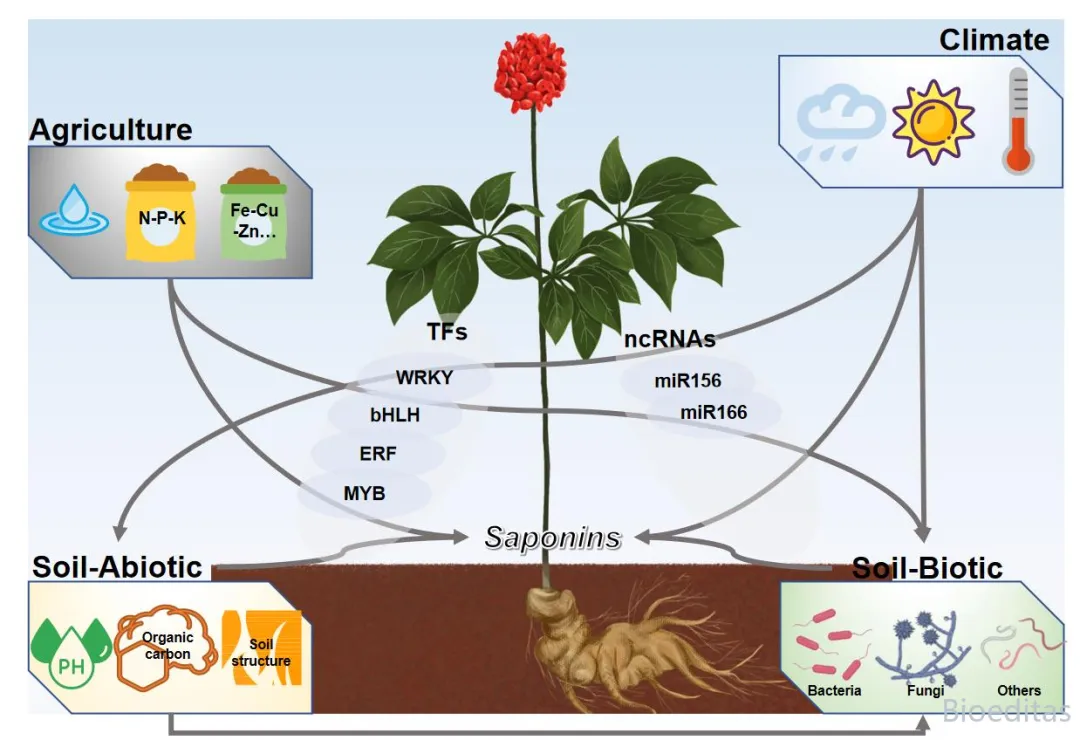
▲人参皂苷生物合成的环境调节(气候因素、土壤因素和农业实践)
结论及未来展望
Conclusions and future prospectives
现代组学技术加速了三七选育
目前,高通量测序技术的经济性和准确性提高了获取基因资源的可行性。利用高通量测序技术和生物信息学深入探索植物的基因组、转录组和蛋白质组数据有助于发现新基因。基于定量质谱法、荧光法和其他高通量方法的先进检测手段可快速检测酶活性并高效筛选基因。现代分子生物学技术在加速培育三七新品种和为三七产业的可持续发展提供宝贵种质资源方面具有举足轻重的作用。
转录调控网络揭示合成机制
转录因子在调节五加科植物生长过程中的生物和非生物胁迫中发挥着关键作用,人参皂苷的积累与其调控功能和环境适应性密切相关。TFs的共表达网络和基因表达模式,但这些TFs错综复杂的调控机制还需要进一步探索。发现新的基因和TFs将大大提高分子植物育种的水平。许多参与人参皂苷生产的TFs同时控制多个基因,因此需要全面了解影响人参皂苷转录调控的分子机制,以制定创新的育种策略。
合成生物学增加了人参皂苷的产量
鉴于种植田七既耗时又耗力,人们开始开发生物工程方法,如组织培养、不定根、转基因植物和微生物细胞工厂,以提高人参皂苷的产量。透彻了解人参皂苷的生物合成和调控机制将大大有利于人参皂苷的生物技术生产。这些进展为生产人参皂苷提供了一个经济、高效的工业平台。确定新的人参皂苷合成方法有望为高效和大规模生产人参皂苷铺平了道路。

