
经典案例 | 兰花/枯叶螳螂染色体水平高质量基因组组装揭示其伪装进化机制
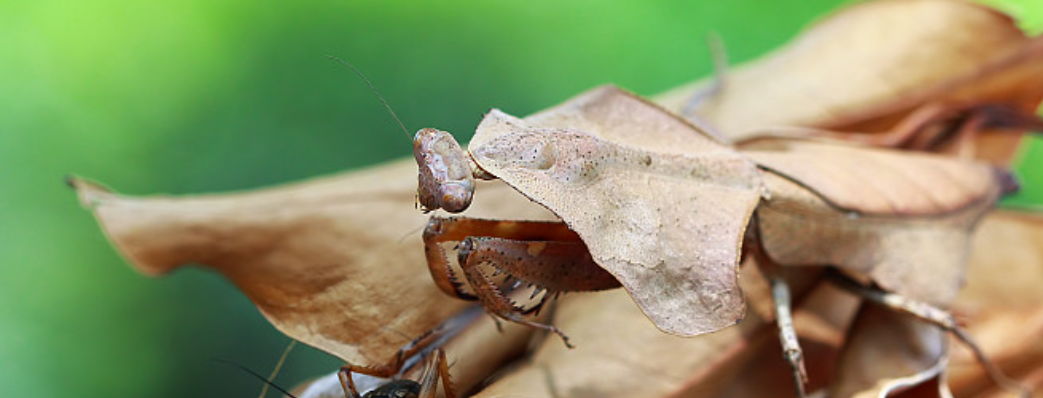
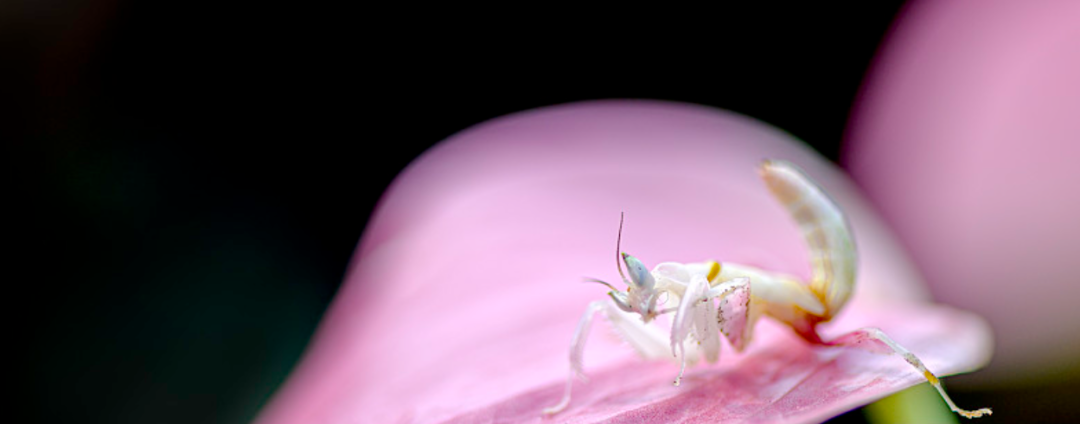
▲兰花螳螂(前)与棱背枯叶螳螂(后)
近期,中国科学院动物研究所魏辅文院士团队在Nature Communications上发表了最新研究成果,报道了兰花螳螂和枯叶螳螂的染色体水平高质量基因组组装,对这两个物种表型创新的遗传和进化机制进行了研究和比较。
文章题目
Evolutionary genomics of camouflage innovation in the orchid mantis
第一作者:Guangping Huang, Lingyun Song
通讯作者:Fuwen Wei
通讯单位:中国科学院动物研究所
杂志:Nature Communications
影响因子:16.6/Q1
文章链接:
https://www.nature.com/articles/s41467-023-40355-1
研究背景
由于捕食者-猎物相互作用是所有生物群落的重要组成部分,自然选择产生的伪装是躲避捕食者或吸引猎物的关键适应策略。动物的伪装包括身体颜色和图案形态改变,以减少视觉捕捉或识别。到目前为止,大多数研究都集中在被捕食者的伪装上,它们能伪装成看似不可食用的、无生命的物体,如树枝、树叶、石头等。然而,很少有人关注掠食者的伪装策略,许多掠食性昆虫的进化分支都表现出一系列形态上的伪装适应,以吸引猎物、伺机捕食。
兰花螳螂(Hymenopus coronatus,螳螂目,花螳科)是已经进化出了模仿成花朵的策略,白和粉红的色加上其“花瓣状”的股叶和宽阔的腹部,使兰花螳螂这种兰花模拟本身比真正的花朵相比更加吸引昆虫授粉者;菱背枯叶螳螂(Deroplatys lobata,螳螂目,枯叶螳科),颜色从棕色到灰色不等,看起来像一片皱巴巴的叶子。
除了身体颜色和图案的神奇组合外,这些螳螂还显示出所有螳螂都具有的特征,包括食虫性和身体尺寸的极端性别二态性。然而,这些独特表型背后的遗传机制仍未被探索,螳螂目谱系基因组资源的缺乏阻碍了其发育和分子机制的深入研究。
技术方案
基因组测序、比较基因组学和转录组学联合分析
研究意义
研究结果为螳螂目提供了两个高质量的染色体水平的基因组组装,使人们能够进一步了解这些非凡的伪装螳螂的生物学和进化。我们的研究提出了新的基因组目录,揭示了螳螂独特伪装的遗传和进化机制,为表型创新和适应提供了进化发育的见解。
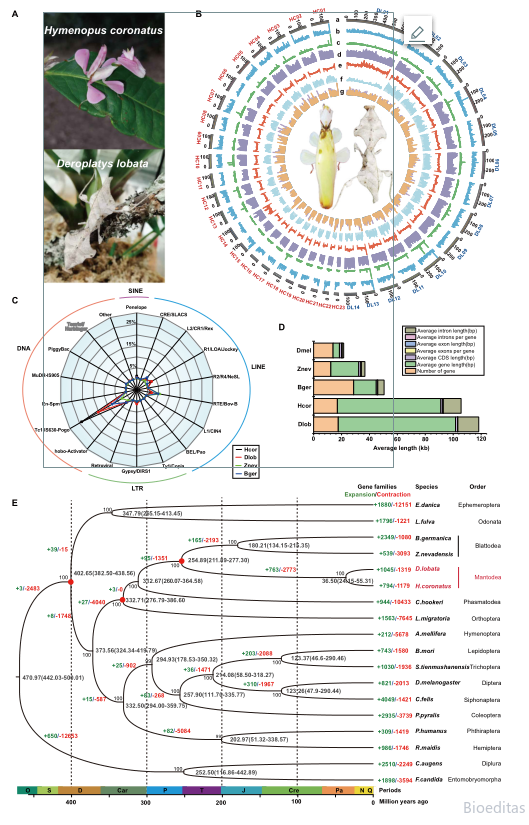
▲螳螂基因组结构与系统发育
为了解码兰花螳螂(2n=46)和枯叶螳螂(2n=28)的基因组特征,研究人员利用综合测序技术对其进行了染色体水平高质量基因组组装,超过98.13%的reads成功锚定在23条染色体上,最终获得的两个基因组大小分别为2.88 Gb和3.96 Gb, N50序列长度分别为15.76 Mb和6.11 Mb。
螳螂基因组比大多数不完全变态异源性昆虫的基因组大,包含高水平的重复元件,占基因组组合的64.94 ~ 66.16%,两种螳螂的TE分别占42.36%和51.92%。线性回归分析显示,DNA转座子的长度与基因组大小的变化呈正相关,这与前人的研究结果一致,表明反转录转座子在螳螂基因组扩增中的重要作用。
研究人员在两个螳螂基因组中分别鉴定出16294个和17691个蛋白质编码基因,平均长度为77.17 ~ 83.96 kb,包含昆虫中完整保守同源性基因的92.5% ~ 98.2%,约90%的基因被功能注释。基因家族进化分析显示,兰花和枯叶螳螂分别扩张了794个和1045个基因家族。
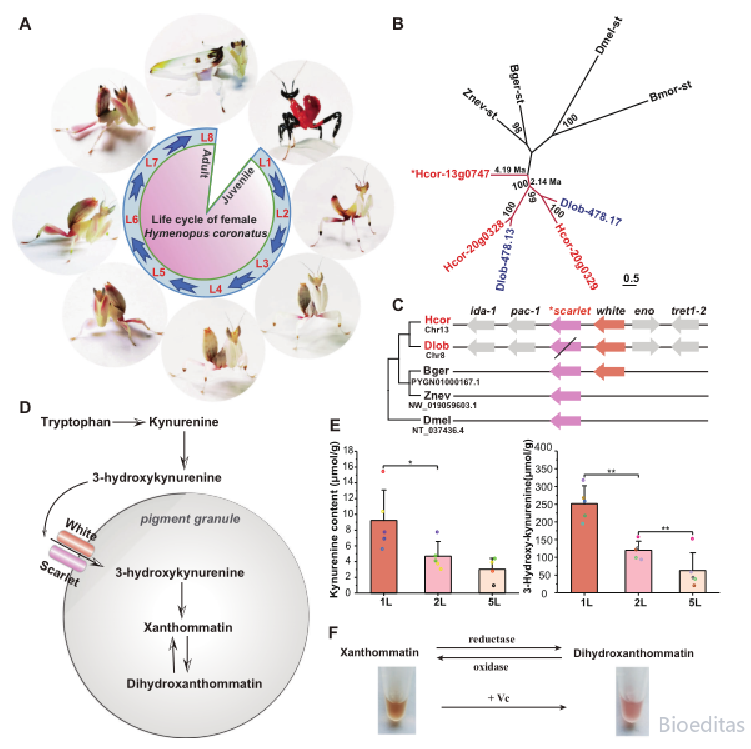
▲伪装颜色的遗传和生化基础
基于从兰花和枯叶螳螂以及来自15个主要现存昆虫目的16种昆虫中鉴定出的324个单拷贝同源性基因重建系统发育树,系统发育结果与最近研究一致,所有bootstrap值都在96%以上。系统发育分析支持最新的系统发育假说,即螳螂目是蜚蠊目的姐妹类群,它们的分化估计大约在二叠纪-三叠纪时期(211.89~277.30Ma)。仿花和仿死叶伪装的分化时间估计为36.50Ma前,随后在古新世时代(66~56Ma)向被子植物为主的生物群落过渡。昆虫传粉作为被子植物传粉的主要方式,可能推动了仿花螳螂的多样化和生态扩张。
兰花螳螂在其发育过程中表现出独特的颜色变化,
基因家族分析显示,ABCG基因家族在兰花螳螂中显著扩增。ABCG亚家族属于ABC超家族,在化合物转运中起着重要作用,Scarlet基因(显红色)在两种螳螂中都进行了扩增,分别在兰花螳螂和枯叶螳螂中有三个和两个拷贝,在大约4.19Ma和2.14Ma时发生了两次Scarlet重复。
比较基因组分析显示,德国小蠊和两种螳螂的Scarlet和White基因高度保守同源,枯叶螳螂缺失了8个Scarlet基因外显子,这可能是其缺乏红色或粉红色的原因。随后又利用效液相色谱法以及提取色素等操作发现,眼黄素是螳螂伪装色的一种重要色素,可以表现出氧化还原依赖性的红色或粉红色变化,ABCG亚家族在两种螳螂眼黄素的合成中起着重要作用。
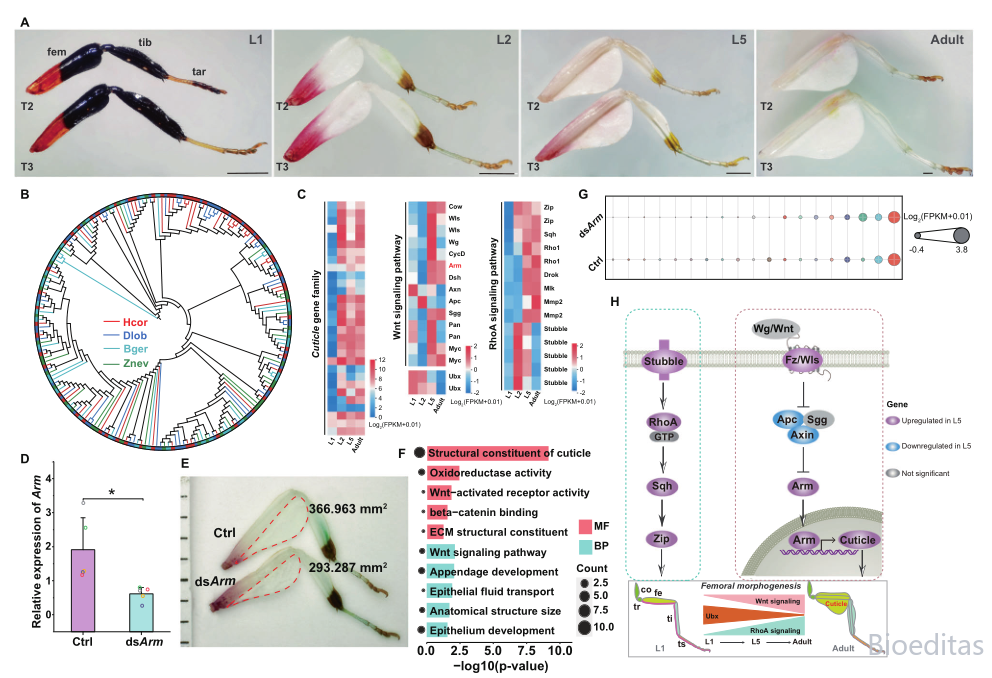
▲仿植物伪装股骨形态发生的分子机制
中、后腿股骨上的大而扁平的外骨骼(花瓣状股叶)使兰花螳螂与花相似,而枯叶螳螂也有叶柄残余物状的附属物。为了研究这些性状的组成,研究人员进行了组织学分析,发现花瓣状结构主要由外骨骼和结缔组织组成。角质层是昆虫外骨骼的主要组成部分,编码基因在兰花和枯叶螳螂中扩增显著。全基因组重复分析显示,角质层基因是串联复制的,在第3号染色体上有35个拷贝。与兰花螳螂L1相比,L2中后腿股叶扩大成类似花瓣状。整合进化生物学和发育生物学对于更好地理解关键表型创新的分子基础至关重要。通过转录组测序对其发育阶段进行分析,发现L2和L5在腿部组织中角质层表达明显高于L1。综合结果表明角质层是花瓣状股叶的主要结构成分,在发育早期,Wnt信号和Ubx的延长表达调控了股骨腹侧外骨骼的扩大。
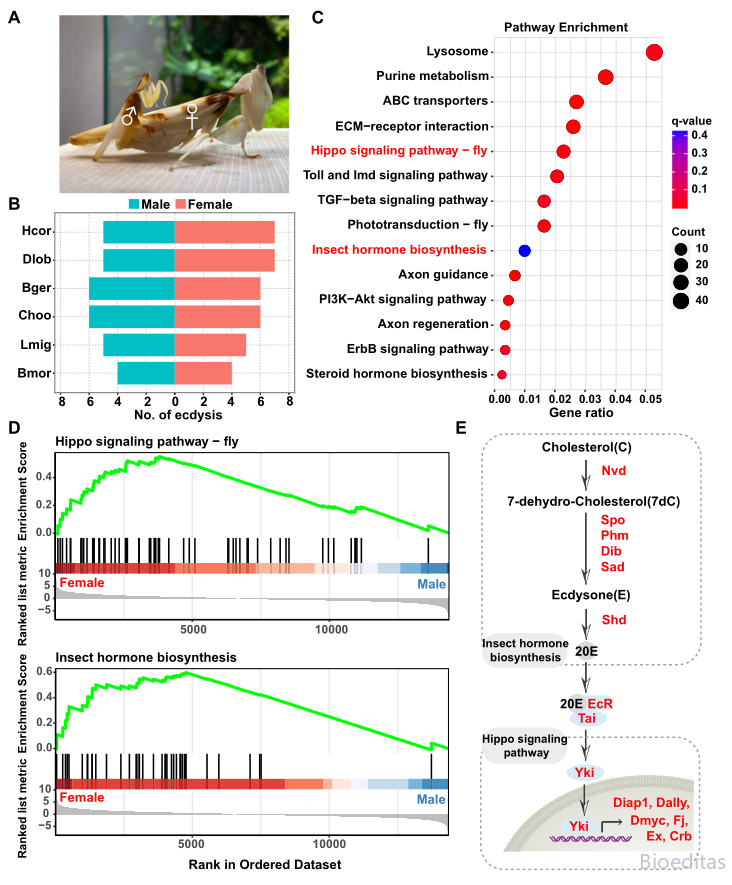
▲螳螂性别二态性与蜕皮发育
性别二态性状对性选择和物种生存很重要。雌性兰花螳螂的体型比雄性大得多,雌性兰花螳螂和枯叶螳螂通常会多蜕皮2-3次,成年时体长比雄性大2-3倍。与螳螂近亲德国小蠊相比,螳螂二态性异常极端,最主要的解释是,雌性体型的增加可以提高繁殖力,并有助于吸引更多猎物,而体型小、行动灵活的雄性则有助于寻找配偶和繁殖。
为了研究这种调节机制,研究人员对兰花螳螂雌雄成虫进行了比较转录组学分析,观察到雌性螳螂中有1,892个转录本下调,1,858个转录本上调,其中大部分转录本富集于Hippo信号通路和昆虫激素生物合成,正如预期的那样,性类固醇激素的生物合成在两性之间也显著富集。
Hippo通路是组织大小的关键调节因子,也是一种进化上保守的信号,可调节许多生物过程,包括细胞生长、器官大小控制和再生。基因集富集分析(GSEA)显示,代表Hippo信号通路的基因在雌性中显著上调;此外,与20E合成相关的基因如Nvd、Spo、Phm、Dib、Sad和Shd在雌性中也有高表达;Yki的应答基因,如diap1、Dally、Dmyc、Fj、Ex和Crb,在雌性中都有高表达,这表明蜕皮发育通过20E和Hippo信号传导之间的串扰在诱导螳螂体型性别二态性中发挥着潜在作用。
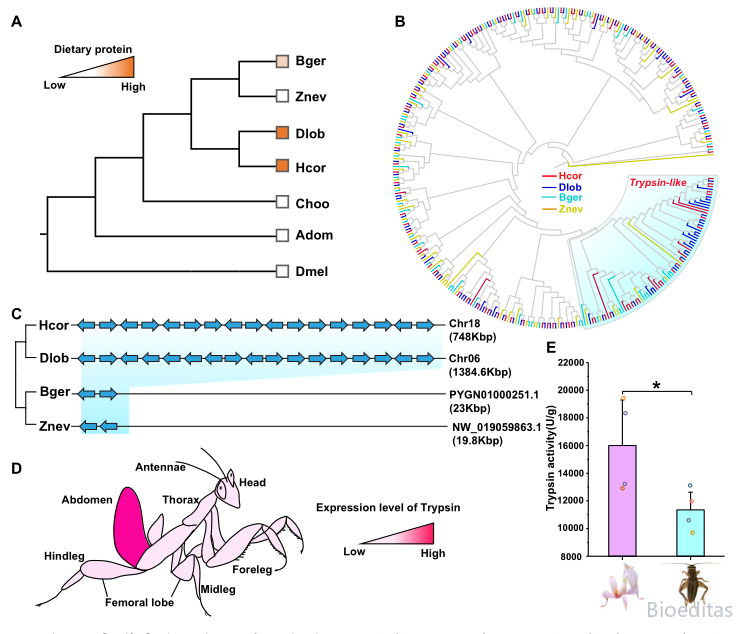
▲螳螂适应食虫的胰蛋白酶基因家族进化
螂是只以富含蛋白质的昆虫为食的捕猎者,而它的近亲则是杂食性的,比如蟑螂。比较基因组分析发现,两种螳螂中胰蛋白酶显著扩增,兰花螳螂的18号染色体和枯叶螳螂的6号染色体上依次排列了17个拷贝。所有胰蛋白酶基因都在腹部特异性表达,而非在头部、胸部或腿部组织,表明胰蛋白酶在螳螂食虫适应中发挥重要作用。

