
文献集锦 | 染色体外环状DNA和结构变异解释拟南芥表观遗传突变基因组不稳定性
近期,法国佩皮尼昂植物基因组与发育实验室Marie Mirouze团队在Nature Communications上发表了最新研究成果,利用反向遗传学方法干扰eccDNA的调控,并探索其在拟南芥突变植物基因组稳定性中的作用。
文章题目
Extrachromosomal circular DNA and structural variants highlight genome instability in Arabidopsis epigenetic mutants
第一作者:Panpan Zhang
通讯作者:Marie Mirouze
通讯单位:法国佩皮尼昂植物基因组与发育实验室
杂志:Nature Communications
影响因子:16.6/Q1
文章链接:
https://www.nature.com/articles/s41467-023-41023-0
研究背景
染色体外环状DNA(eccDNA)存在于真菌、果蝇、植物和哺乳动物等各种真核细胞中,最近由于mobilome-seq、CIDER-seq等特定eccDNA测序方法的发展,这部分细胞遗传物质才得到关注。eccDNA可以通过同源重组(HR)或非同源末端连接(NHEJ)将活性转座因子(TEs)的染色体外线性DNA环化而形成。eccDNA的作用不胜枚举:如在酵母中,eccDNA在氮限制条件下产生,并有助于适应压力;在杂草中,eccDNA编码的基因有助于抗除草剂的研发生产,表明eccDNA在暴露于选择压力下的植物中国能够发挥其强适应性。然而,目前在癌细胞中eccDNA对其在基因组中潜在重新整合的作用已经被表征,但在其他生物系统中,eccDNA与基因组稳定性之间的相互作用却很少被描述。
植物中的TEs在其生命周期的不同阶段受到表观遗传调控的控制,其中包括DNA甲基化(基因沉默)和转录后基因沉默(PTGS),受这些途径之一或组合影响的突变植物能够具有高水平的TE转录。DNA甲基化是由甲基转移酶和RNA定向DNA甲基化途径(RdDM)直接维持的,它也间接地由染色质重塑酶DDM1(减少DNA甲基化1)维持,参与TE异色组蛋白变体H2A.W的沉积。最近的研究表明组蛋白变异在DNA修复中具有作用,在拟南芥中,DDM1确保双链断裂(DSBs)的HR修复。DDM1的缺失与表观基因组的变化有关,特别是通过DNA甲基化、H3K9和H2A.W组蛋白甲基化的变化,目前需要探索的是DDM1缺失是否会对植物中eccDNA的积累产生影响。
技术方案
反向遗传学方法
mobilome-seq、Illumina和ONT测序
复杂结构变异检测
研究意义
研究发现了与基因组不稳定性相关的高eccDNA负荷,并推测ddm1突变植株中丰富eccDNA可触发替代DNA修复途径。对TE-eccDNA与基因组不稳定性之间联系的探索加深了对于植物DNA修复以及进化过程的了解,为拟南芥等其他真核生物的生长发育研究提供了非常重要的理论价值。
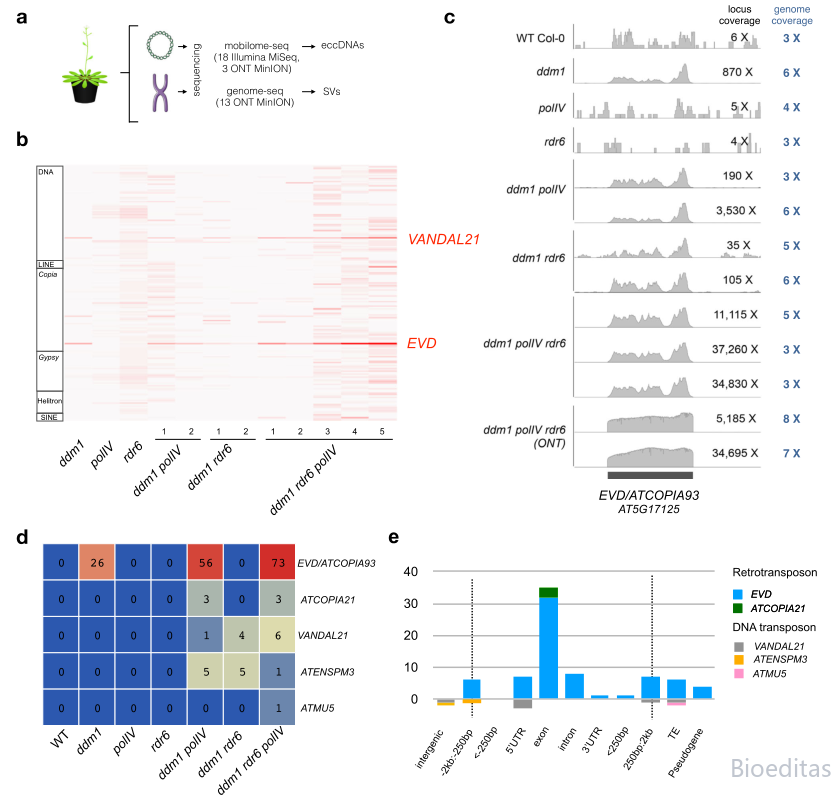
▲拟南芥表观遗传突变体的高eccDNA负荷与基因组中新的TEs插入有关
为了表征野生型和表观遗传突变体(ddm1、polI、Vrdr6、ddm1 polIV、ddm1 rdr6和ddm1 polIV rdr6)的eccDNA序列,研究人员进行了一系列mobilome-seq实验,扩增环状DNA分子并使用Illumina和ONT测序以研究SVs。最丰富的一类TE-eccDNA被鉴定为与LTR反转录转座子EVD相对应,这种TE先前在低甲基化突变体中能够被观察到。EVD-eccDNA存在于ddm1突变体组合突变体中,但不存在于polIV或rdr6单突变体中。
与WT中的6X相比,三重突变体中EVD/AT5G17125基因座的测序覆盖率高达37260X;第二个富集的TE-eccDNA对应于突变体家族VANDAL21的DNA转座子,三重突变体中VANDAL21/AT2TE42810基因座的测序覆盖率达到2080X,而在WT中为6X。EVD和VANDAL21基因座上数覆盖了整个元件,证实这些基因座导致eccDNA的形成。
为了研究相应TEs的活性,研究人员分析了由EVD和VANDAL21介导的基因组SVs,并在3个ddm1 polIVrdr6突变株中分别检测到73个和6个新插入。在单个ddm1株中检测到26个EVD插入,在单个ddm1 polIV中分别检测到56个EVD插入和1个VANDAL21插入,而在ddm1 rdr6中没有检测到任何EVD插入。此外,在ddm1 polIV和ddm1 polIV rdr6突变体中未检测到eccDNA,可能在早期代或不同发育阶段活跃。

▲截断的EVD在拟南芥表观遗传突变体中被检测为eccDNA和新的整合基因组拷贝
Ty1/Copia逆转录转座子包含围绕开放阅读框的两个LTRs,该阅读框编码GAG和POL(多聚蛋白) , POL随后被切割成四个活性功能结构域,即AP(天冬氨酸蛋白酶)、IN(整合酶)、RT(逆转录酶)和RH (RNase H)。除了具有1个或2个LTRs的eccDNA对应于预期的全长EVD外,还发现了具有部分结构的eccDNA:GAG结构域缺失(13%),In和RT结构域缺失(19%),LTR结构域缺失(20%)。这些截断的EVD-eccDNA占所有部分的52%,而全长EVD eccDNA占所有EVD-eccDNA的48%。尽管ONT读取的覆盖率非常高,但无法检测到用于截断的热点。
研究排除了单一polIV和rdr6突变体以及ddm1 rdr6双突变体,因为在这些突变背景中没有检测到新EVD插入,在突变体的不同位点上检测到与截断的反转录转座子结构相对应的新插入。还观察到ATCOPIA21的插入被截断,其中两个被截断的插入包含明确的靶位重复(TSDs),且所有截断的插入都有两个LTRs,表明只有一小部分截断的TEs与新的插入事件有关。
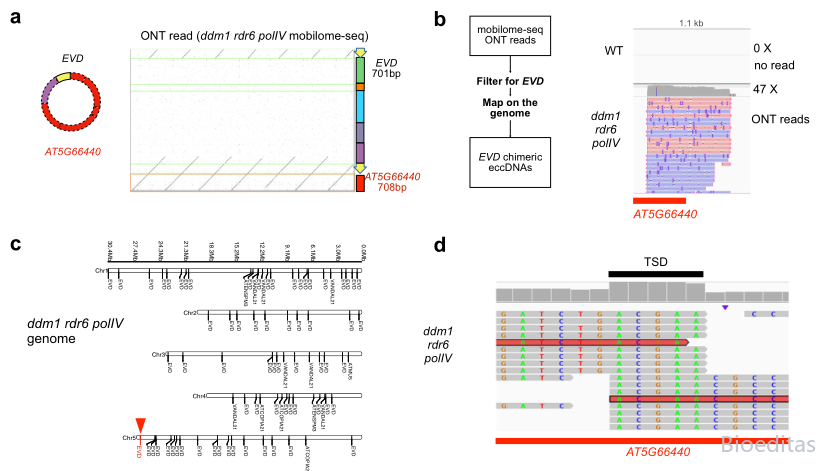
▲含有截断的EVD基因融合的嵌合eccDNA对应于ddm1 rdr6 polIV突变体的嵌合基因组插入
迄今为止描述的所有eccDNA均由TE衍生的DNA组成。相比之下,在ddm1 polIV rdr6植物中观察到嵌合eccDNA的显著例子,这个eccDNA由单个长reads中的7个拷贝支持,部分EVD片段和部分AT5G66440基因(编码tRNA甲基转移酶)融合在一起。从三突变植物的ONT mobilome-seq数据集中提取含有EVD的reads,并将其映射到参考基因组,图谱证实在AT5G66440位点存在嵌合;此外还在相同植物的基因组中相应的位点(AT5G66440)检测到EVD插入,两侧有一个5bp的TSD,这是整合酶介导插入的标志,表明嵌合的eccDNA可能起源于EVD在该位点的新插入。
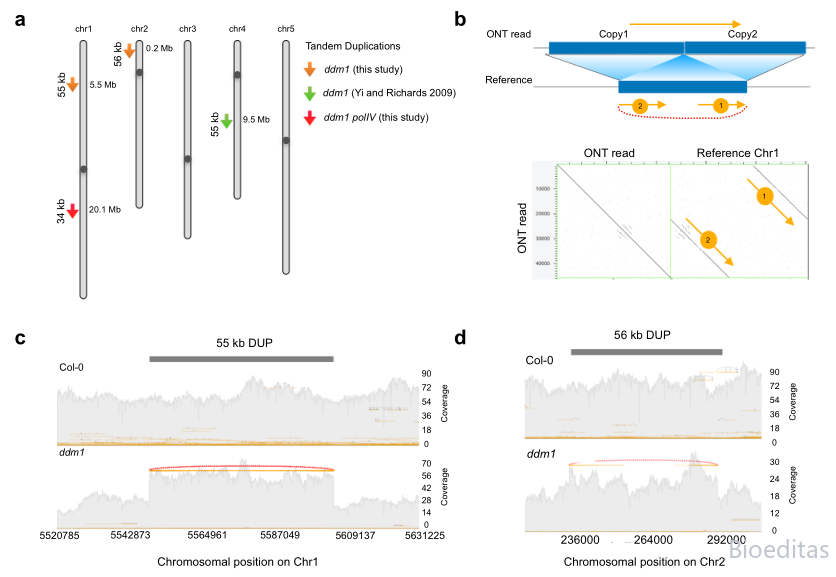
▲ddm1和ddm1 polIV突变株中的SVs检测
研究人员在两个ddm1中分别检测到55kb (Chr1:5,548,395-5,603,615)和56kb的重复(Chr2:231,518-287,731),第一次复制从AT1G16220的5'UTR开始,在AT1G16390外显子内结束。分析了跨越两个串联拷贝交界处的长reads,并通过点图确认了55kb的重复,没有在两个串联拷贝中检测到SNPs,但与第一个拷贝相比,第二个拷贝在左侧断点处略微低甲基化,表明这两个串联拷贝是最近的,只是在表观遗传模式上有所不同。第二个重复长度为56kb,从AT2G01510基因的外显子开始,在两个DNA转座子(AT2TE01165和AT2TE01180)之间结束。在ddm1 polIV的重复区域中发现了第三个34kb长的重复。没有发现与这些大片段复制相对应的eccDNA,这表明这些eccDNA形式可能是短暂的,或者这些SVs可能通过其他途径启动。所以推断eccDNA的积累可能会影响DNA修复途径。

▲研究在拟南芥表观遗传突变体中检测到总体基因组不稳定性
研究发现ddm1和ddm1 polIV中的SVs模式(大串联重复和小缺失)与秀丽隐杆线虫模型中BRCA1相关的SVs模式相似,在BRCA1生命周期中增殖的TE产生线性染色体外DNA,呈现双链断裂(DSBs),最终可能通过同源重组或非同源末端连接产生环状DNA。在低甲基化的植物中,高负荷的eccDNA加上TEs的积极整合(通过整合酶或转座酶)可能导致细胞中DSBs过量,使修复机制过载,这可能触发DNA修复的替代途径。

